1. فروت ست پس از برداشت؛ چرا نباید تا ریزش برگها صبر کرد؟
اکتبر 6, 2026
رابطه آهن و منگنز در بیماری های گیاهی؛ مهندسی دفاع بیوشیمیایی گیاه
رابطه آهن و منگنز در بیماری های گیاهی مستقیماً میزان نفوذپذیری بافت و پایداری ایمنی فیزیولوژیک گیاه را در برابر انواع پاتوژنهای قارچی و باکتریایی کنترل میکند. تعادل این دو عنصر، تعیینکننده ضخامت لایههای سلولی محافظ و همچنین شدت تولید رادیکالهای آزاد کشنده در محل حمله میکروارگانیسمها است. بر هم خوردن این موازنه، به ویژه افزایش بیرویه آهن یا افت غلظت منگنز بافت، با تضعیف مسیر ساخت لیگنین و تسریع نکروز سلولی، گیاه را به میزبانی بیدفاع در برابر هجوم عوامل بیماریزا تبدیل میسازد.
خیلی از کشاورزان تصور میکنند تغذیه گیاهی صرفاً ابزاری برای افزایش تناژ و رشد رویشی است، اما واقعیت فراتر از این نگاه سنتی است. در فیزیولوژی پیشرفته، تغذیه معدنی ستون فقرات ایمونولوژی گیاهی به شمار میرود. منگنز و آهن دو کاتیون فلزی واسطه با خواص ردوکس فعال هستند که نقش کلیدی در سرنوشت هر نوع برهمکنش میان گیاه و بیمارگر بازی میکنند. اگر یکی از این دو بدون در نظر گرفتن دیگری به گیاه خورانده شود، سدهای دفاعی فرو میریزند.
حالا ببینید، وقتی از مقاومت به بیماری حرف میزنیم، دقیقاً از چه حرف میزنیم؟ از این صحبت میکنیم که آیا میسل قارچ میتواند لایه اپیدرم را سوراخ کند یا خیر، و اگر سوراخ کرد، آیا سلولهای پارانشیم میتوانند با ترشح سموم زیستی قارچ را خفه کنند یا خیر. آهن و منگنز دقیقاً فرماندهان این دو جبهه دفاعی هستند.
معماری بیوشیمیایی دفاع: منگنز، کاتالیزور سدهای مکانیکی
منگنز خط اول مهار فیزیکی بیماریها است. این عنصر با فعالسازی آنزیمهای ساختار دیواره سلولی، امکان رسوب سریع پلیمرهای غیرقابل هضم را برای هاگهای متجاوز غیرممکن میکند. غیبت این عنصر به معنی باز گذاشتن دروازههای ورودی برگ و ریشه به روی آنزیمهای تجزیهکننده بافت است.
فعالسازی مسیر شیکیمات و آنزیمهای لیگنینساز (PAL و CAD)
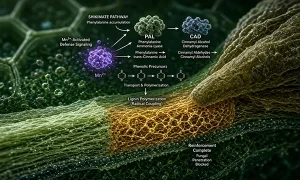
نکته جالب اینجاست که منگنز بیش از هر عنصر دیگری در دنیای گیاهی، سنتز ترکیبات محافظتی فنلی را شتاب میبخشد. یون منگنز فعالکننده مستقیم آنزیمهای فنیلآلانین آمونیا-لیاز (PAL) و سینامیل الکل دهیدروژناز (CAD) در مسیر بیوسنتز لیگنین است که ضخامت سد مکانیکی گیاه را در برابر نفوذ قارچها تعیین میکند. وقتی قارچی مثل Fusarium یا Rhizoctonia تلاش میکند وارد بافت میزبان شود، آنزیمهای کوتیناز و پکتیناز ترشح میکند تا لایههای گیاهی را حل کند.
گیاهی که دارای منگنز کافی است، بلافاصله پاسخ موضعی نشان میدهد. با هجوم سریع یونهای منگنز به محل تماس، سنتز مونومرهای فنلی چند برابر میشود. این مونومرها بلافاصله پلیمریزه شده و لیگنین نامحلول میسازند. لیگنین همان سیمان غیرقابل هضمی است که جلوی آنزیمهای پاتوژن میایستد. در مزارعی که با کمبود پنهان منگنز مواجه هستند، دیواره سلولی نازک و ژلاتینی باقی میماند. پاتوژن در این شرایط بدون صرف انرژی زیاد، بافت را سوراخ میکند و کل آوند را به تسخیر خود درمیآورد.
داستان از این قراره: منگنز فقط لیگنین تولید نمیکند، این کاتیون تولید سوبرین را نیز در ریشهها سرعت میدهد. سوبرین لایه چوبپنبهای غیرقابل نفوذی است که مانع خروج مواد قندی و اسیدهای آمینه به ریزوسفر میشود. وقتی ترشحات ریشه کاهش پیدا کند، قارچهای خاکزاد منبع غذایی کمتری برای جوانهزنی و ردیابی ریشه خواهند داشت.
سیستم سوپراکسید دیسموتاز منگنزی (Mn-SOD) در مهار سمیت سلولی
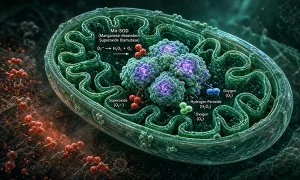
گیاه حین درگیری با عامل بیماریزا، مقدار عظیمی رادیکال آزاد تولید میکند تا مهاجم را نابود کند. اما مهار این سلاح کشنده برای خود سلول گیاهی الزامی است. این وظیفه بر دوش سوپراکسید دیسموتاز متصل به منگنز (Mn-SOD) است که عمدتاً درون میتوکندریها مستقر است. این آنزیم گونههای فعال اکسیژن مخرب را خنثی کرده و اجازه نمیدهد سیستم تنفس سلولی گیاه بر اثر استرس اکسیداتیو درونی از کار بیفتد. در صورت کمبود منگنز، بافت میزبان پیش از آنکه پاتوژن آن را از بین ببرد، زیر بار تنش خودایمنی اکسیداتیو نابود میشود.
استراتژی سرکوب قارچ پاخوره (Gaeumannomyces) با تثبیت Mn2+
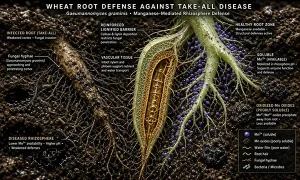
آیا تا به حال با خود فکر کردهاید چرا قارچ پاخوره گندم (Gaeumannomyces graminis) تا این حد ویرانگر است و سموم قارچکش معمولی اثر چندانی روی آن ندارند؟ پاسخ در یک سرقت متالورژیکی زیرزمینی نهفته است! این پاتوژن قارچی حین حمله به ریشه غلات، سیستم اکسیداسیون زیستی منگنز را راه میاندازد. قارچ منگنز دو ظرفیتی (Mn2+) را که تنها فرم قابل جذب برای ریشه گیاه است، به منگنز چهار ظرفیتی نامحلول (Mn4+) تبدیل میکند.
با این حقه بیولوژیک، قارچ دسترسی ریشه به منگنز را در منطقه تماس قطع میکند. سلولهای ریشه که از منگنز تهی شدهاند، دیگر قادر به ترشح فیتوالکسینها و تولید لیگنین نیستند. در نتیجه، ریشه بدون داشتن اسکلت دفاعی تسلیم پیشروی هیفهای قارچی میشود. بر اساس اصول آسیبشناسی فیزیولوژیک گیاهی، پاتوژنهای ویرانگری همچون پاخوره غلات توانایی گیاه در مهار بیماری را از طریق اکسیداسیون موضعی منگنز و تبدیل آن به فرم غیرفعال خلع سلاح میکنند.
تثبیت فرم احیاشده منگنز (Mn2+) در خاک از طریق مصرف کودهای آمونیومی همراه با بازدارندههای نیتریفیکاسیون، پیاچ ریزوسفر را اسیدی نگه میدارد و از اکسیداسیون این کاتیون جلوگیری میکند. به همین سادگی، بدون نیاز به سموم سیستمیک سنگین، ریشه سلامت خود را بازیابی میکند.
حمله هاگ پاخوره ──> ترشح آنزیم اکسیدکننده Mn توسط قارچ ──> تبدیل Mn2+ (محلول) به Mn4+ (نامحلول) ──> قحطی موضعی منگنز در بافت گیاه ──> فلج شدن سدهای لیگنینی ──> پوسیدگی کامل ریشه
دینامیک دوگانه آهن: سلاح اکسیداتیو یا محرک طغیان نکروتروفها؟
آهن در ساختار تنفس سلولی، کلروفیل و حاملهای الکترونی زنجیره فتوسنتزی ضروری است. در پاتولوژی گیاهی، آهن مثل شمشیری دو لبه عمل میکند. رفتار این فلز انتقال، بستگی مستقیم به نوع سبک زندگی بیماریزای مهاجم دارد؛ آیا با یک پاتوژن بیوتروف طرف هستیم یا یک نکروتروف بیرحم؟
واکنش فنتون و انفجار آپوپتوزی علیه بیوتروفها
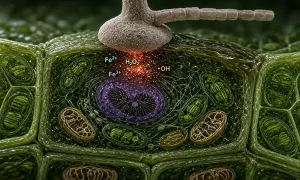
وقتی یک قارچ بیوتروف (مانند سفیدکهای پودری) به سلول حمله میکند، گیاه تمایل دارد سلولهای خودی را فدا کند تا پاتوژن زنده از گرسنگی بمیرد. اینجاست که آهن وارد صحنه میشود. آهن از طریق واکنش فنتون، رادیکال هیدروکسیل تولید میکند:
رادیکال هیدروکسیل (OH•) مخربترین اکسیدان شناختهشده در سیستمهای زنده است. غلظت بالای این رادیکال، فوراً واکنش فوقحساسیت (HR) یا همان مرگ برنامهریزیشده سلولی را کلید میزند. سلول میزبان خودکشی میکند و قارچ بیوتروف که نیاز به بافت زنده دارد، مهار میشود. آهن فلزی با پتانسیل اکسیداسیون بالاست که با تحریک واکنش فنتون، شدت انفجار اکسیداتیو را در واکنش فوقحساسیت علیه پاتوژنهای بیوتروف تنظیم میکند.
خطرات بار اضافی آهن در تقویت بافتخواری نکروتروفها
حالا بیایید زاویه دید را عوض کنیم. اگر قارچ مهاجم، پاتوژنی نکروتروف مانند Botrytis cinerea، Sclerotinia یا گونههای Alternaria باشد، چه اتفاقی میافتد؟ این پاتوژنها عاشق بافت مرده هستند! آنها برای رشد و تکثیر نیاز دارند که سلولهای گیاهی نابود و متلاشی شوند.
اگر غلظت آهن آزاد در آپوپلاست بیش از اندازه بالا باشد، واکنش فنتون لجامگسیخته عمل کرده و سطح نکروز بافتی را وسیعتر میکند. گیاه با تولید رادیکالهای هیدروکسیل ناخواسته، مسیر گسترش پاتوژن نکروتروف را آسفالت میکند! آهن اضافی دقیقاً همان سوختی است که آتش بافتمردگی را شعلهورتر میسازد. از طرف دیگر، خود این قارچها برای توسعه میسیلیوم به آهن نیاز مبرم دارند و بافت غنی از آهن یک ضیافت رایگان برای آنها به شمار میرود.
نبرد ریزوسفری سیدروفورها در توقف فوزاریوم و پیتیوم
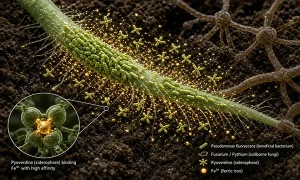
نبرد برای تصاحب آهن در خاکهای زراعی یک جنگ زیستی تمامعیار است. همه ارگانیسمها برای حفظ ساختار DNA و آنزیمهای متابولیکی به آهن محتاجند. قارچهای خاکزاد سیدروفور ترشح میکنند تا آهن نامحلول خاک را بربایند. باکتریهای پروبیوتیک مانند Pseudomonas fluorescens نیز ترکیبات شلاتهکننده فوقالعاده قدرتمندی مثل پیووردین ترشح میکنند.
ثابت پایداری کلات باکتریایی پیووردین به حدی بالاست که عملاً هیچ آهنی برای قارچهای بیماریزا باقی نمیگذارد. قارچهای خسارتباری چون Fusarium oxysporum در حضور این باکتریها دچار گرسنگی شدید آهن میشوند، به طوری که قادر به جوانهزنی اسپور نخواهند بود. پدیده “خاکهای سرکوبگر” مستقیماً از همین مدیریت رقابتی آهن در منطقه ریزوسفر سرچشمه میگیرد.
آنتاگونیسم جذب در ریشه: تقابل در دروازه ترانسپورتر IRT1
گیاهان دوپایهای و گرامینهها سازوکارهای مختلفی برای برداشت آهن دارند (استراتژی نوع I و نوع II). در گیاهان استراتژی نوع یک، ترانسپورتر IRT1 (Iron-Regulated Transporter 1) نقش دروازهبان اصلی ورود آهن دوظرفیتی (Fe2+) به درون سلولهای ریشه را ایفا میکند.
اما نقطه ضعف فیزیولوژیک این ترانسپورتر این است که اختصاصیت مطلق ندارد. این پروتئین غشایی کانالی است که علاوه بر آهن، کاتیونهای دوظرفیتی دیگری چون منگنز (Mn2+) و روی (Zn2+) را نیز جابهجا میکند. وقتی یک کشاورز دوزهای سنگینی از کلاتهای سنتزی آهن (مانند Fe-EDDHA یا Fe-EDTA) را به خاک تزریق میکند، ترانسپورترهای IRT1 کاملاً توسط یونهای آهن اشباع میشوند.
نتیجه چیست؟ جذب منگنز به شدت سرکوب میشود. گیاه به ظاهر برگهای سبز و براقی پیدا میکند، اما در سطح زیرین، کمبود القایی شدید منگنز در حال تخریب سدهای سلولی است. به محض حمله یک اسپور قارچی، گیاه متوجه میشود که انبار منگنز برای ساخت لیگنین خالی است و بافتها مقاومت اولیه را از دست دادهاند.
| شاخص فیزیولوژیک و پاتولوژیک | منگنز (Mn) |
آهن (Fe) |
|---|---|---|
| نقش محوری در ایمنی | تقویت سد فیزیکی و تولید فیتوالکسین | راهاندازی انفجار اکسیداتیو و دفاع بیوشیمیایی |
| آنزیمهای کلیدی وابسته | PAL، CAD، پراکسیدازها و Mn-SOD | کاتالاز، پراکسیداز و سیتوکروم اکسیدازها |
| پاتوژن هدف اصلی بازدارندگی | قارچهای ریشهای و طوقهای (Gaeumannomyces) | پاتوژنهای بیوتروف و برگزاد (Blumeria) |
| خطر اضافه مصرف برای گیاه | مسمومیت سلولی، اختلال در کلروفیل | تشدید تخریب سلولی توسط قارچهای نکروتروف |
| اثر کمبود بر گسترش بیماری | نازک شدن دیواره سلولی و تخریب سریع آوندها | توقف واکنش فوقحساسیت و مهار نشدن بیوتروفها |
| محل اثر در ساختار دفاعی | دیواره سلولی اولیه و ثانویه، ماتریکس آپوپلاست | میتوکندری، کلروپلاست و وزیکولهای ایمنی |
مدیریت زراعی و بالینی در مزرعه: بهینهسازی نسبت Fe:Mn در برنامه IPM
تنظیم مقادیر مصرفی این دو عنصر نباید مستقل از یکدیگر انجام شود. نسبت استاندارد غلظت Fe به Mn در ماده خشک برگ اکثر گیاهان زراعی و باغی باید در محدوده ۱.۵ به ۱ تا حداکثر ۲.۵ به ۱ تثبیت شود تا تعادل میان مقاومت فیزیکی و بیوشیمیایی پایدار بماند. اگر این نسبت به بیش از ۳ به ۱ صعود کند، زنگ خطر کمبود پنهان منگنز و نفوذ قارچها به صدا درمیآید؛ اگر این نسبت به زیر ۱ سقوط کند، کلروز برگی و اختلال فتوسنتزی سیستم دفاعی را زمینگیر میکند.
تنظیم اسیدیته ریزوسفر با منابع کودی
نوع کود نیتروژنی که انتخاب میکنید، رابطه مستقیم با رفتار منگنز در برابر بیماریهای گیاهی دارد. استفاده از کودهای با پایه سولفات آمونیوم، آزاد شدن یونهای H+ را در طوقه و ریشه تحریک میکند. اسیدی شدن ریزوسفر تا محدوده ۵.۵ الی ۶.۲، منگنز رسوبکرده را به سرعت به فرم فعال Mn2+ تبدیل مینماید.
برعکس، استفاده افراطی از کودهای نیتراتی باعث قلیایی شدن موضعی ریشه میشود. پیاچ که بالا برود، منگنز بیدرنگ رسوب میکند و در چنگال اکسیداسیون قارچی گرفتار میشود. به این ترتیب، صرفاً با تغییر منبع نیتروژن، میتوان مقاومت ریشه به بیماریهایی نظیر اسکب سیبزمینی (Streptomyces scabies) و سیاه شدن طوقه را بدون مصرف سم کنترل کرد.
راهنمای بالینی محلولپاشی در زمان طغیان پاتوژنها
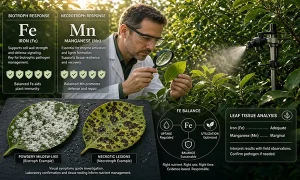
اگر در مزرعه با نشانههای اولیه بیماریهای لکهبرگی یا سفیدکها مواجه شدید، استراتژی کودی فوراً باید اصلاح شود:
- در صورت شیوع قارچهای بیوتروف (مانند سفیدک پودری)، محلولپاشی ملایم کلات آهن با دوز استاندارد و کنترلشده، پتانسیل اکسیداتیو برگ را برای مهار نفوذ هیف تقویت میکند. در نتیجه
- در صورت مشاهده لکههای نکروتیک و آبسوخته ناشی از قارچهای نکروتروف (Botrytis یا Alternaria)، مصرف کودی آهن باید بلافاصله متوقف شود و منگنز به فرم
سولفات منگنز یا کلات منگنز با غلظت ۰.۵ تا ۱ در هزار محلولپاشی گردد. این کار فعالیت آنزیمهای ساخت دیواره را به حداکثر میرساند تا دور لکه آلوده، خط محاصره لیگنینی کشیده شود.
سیگنالهای پایش و اعتماد در سلامت خاک
اندازهگیری دورهای برگ و آنالیز خاک به روش عصارهگیری DTPA تنها معیار قابل اعتماد برای قضاوت درباره توازن این دو عنصر است. تکیه بر مشاهده چشمی فریبنده است؛ چرا که کمبود منگنز در مراحل اولیه بدون علائم کلروز مشهود، سدهای لیگنینی را غیرفعال میکند و زمانی کشاورز متوجه فاجعه میشود که آوندهای گیاه سیاه شدهاند.
جمعبندی مهندسی تغذیه در مهار بیماریها
رابطه آهن و منگنز نشان میدهد که مدیریت بیماریهای گیاهی بدون در نظر گرفتن شیمی عناصر ریزمغذی غیرممکن است. منگنز با تثبیت لیگنین، سوبرین و فنلها، قلعه فیزیکی گیاه را غیرقابل نفوذ میسازد. در سوی مقابل، آهن با تنظیم دقیق آبشار ردوکس و واکنش فنتون، چاشنی انفجارهای سلولی موضعی را کنترل میکند. کلید مهار بیماریها در باغات و مزارع، نه غرقاب کردن خاک با کلاتهای گرانقیمت آهن است و نه مصرف هیجانی قارچکشها؛ بلکه حفظ توازن بار کاتیونی در منطقه ریشه و پایش نسبت Fe:Mn برای دستیابی به حداکثر مصونیت فیزیولوژیک است.
پرسشهای متداول فنی (FAQ)
کمبود منگنز فعالیت آنزیمهای فنیلآلانین آمونیا-لیاز (PAL) و سینامیل الکل دهیدروژناز (CAD) را متوقف میسازد. این رخداد باعث اختلال در پلیمریزاسیون لیگنین دیواره سلولی شده و به هاگ قارچهای خاکزاد اجازه میدهد بدون مقاومت فیزیکی وارد آوندها شوند.
آهن اضافه با رانش واکنش فنتون، رادیکالهای هیدروکسیل آزاد میکند که مرگ سلولی بافت را گسترش میدهد. پاتوژنهای نکروتروف از بافت مرده تغذیه میکنند و این گسترش نکروز، بستری مناسب برای تسریع کلونیزاسیون آنها فراهم میسازد.
هر دو کاتیون دوظرفیتی (Fe2+ و Mn2+) از ناقل غشایی یکسانی به نام IRT1 در سلولهای ریشه عبور میکنند. مصرف بیش از حد آهن این کانالها را اشباع کرده و با جلوگیری از جذب منگنز، کمبود القایی ایجاد میکند.
سیدروفورهای باکتریایی مفید با میل ترکیبی بالا آهن سه ظرفیتی ریزوسفر را کلاته میکنند. این فرآیند باعث محرومیت پاتوژنهای خاکزاد از آهن مورد نیاز برای رونویسی ژن و جوانهزنی میگردد.
در اکثر گیاهان، نسبت فیزیولوژیک بهینه Fe به Mn در آنالیز برگ خشک باید بین ۱.۵ به ۱ تا ۲.۵ به ۱ حفظ شود تا هم ساختارهای دیواره سلولی و هم پتانسیل اکسیداتیو دفاعی در اوج کارایی باشند.
؟
سوالات متداول
نسبت بهینه آهن به منگنز (Fe:Mn) در گیاهان چقدر است و چرا اهمیت دارد؟
نسبت بهینه آهن به منگنز در بافت خشک برگ بین ۱.۵ به ۱ تا ۲.۵ به ۱ است. حفظ این تعادل موجب همافزایی ساخت دیواره لیگنینی توسط منگنز و کنترل انفجار اکسیداتیو مهارکننده پاتوژنها با آهن میشود. عبور نسبت از ۳ به ۱ سبب کمبود القایی منگنز و طغیان قارچها خواهد شد.
چرا منگنز مانع نفوذ پاتوژنهای قارچی خاکزاد مانند پاخوره و فوزاریوم میشود؟
منگنز با فعالسازی آنزیمهای کلیدی فنیلآلانین آمونیا-لیاز و سینامیل الکل دهیدروژناز در مسیر شیکیمات، سنتز لیگنین و سوبرین را شتاب میدهد. این فرآیند با تشکیل سد فیزیکی نفوذناپذیر در دیواره سلولی ریشه، ترشحات قندی را متوقف ساخته و مانع نفوذ آنزیمی و فیزیکی هیفهای قارچ به درون بافت آوندی گیاه میگردد.
در زمان حمله قارچهای نکروتروف چرا باید مصرف کود آهن بلافاصله متوقف شود؟
قارچهای نکروتروف از بافت مرده تغذیه میکنند. مقادیر اضافی آهن در آپوپلاست با تشدید واکنش فنتون و تولید بیش از حد رادیکال هیدروکسیل، تخریب غشا و نکروز سلولی را وسعت میبخشد. قطع مصرف آهن و محلولپاشی منگنز با تحریک تولید لیگنین، مانع از تغذیه و پیشروی سریع این قارچهای تخریبکننده بافت میشود.