1.محلولپاشی ترکیبی ویتالین و فروتست پس از برداشت: بیمه باردهی سال آینده
سپتامبر 16, 2026
تیوسولفات پتاسیم (KTS)؛ موتور پیشران انتقال قند و رنگگیری میوه
تیوسولفات پتاسیم (KTS) یک ترکیب کودی مایع و با غلظت بالاست که تلفیق همافزای پتاسیم محلول (25% K2O) و گوگرد تیوسولفاتی (18% S) را بدون نیتروژن یا کلر در اختیار بافتهای گیاهی قرار میدهد. این مولکول منحصربهفرد با فعالسازی پمپهای پروتونی آوند آبکش، سرعت بارگیری ساکارز و هدایت قند به سمت میوهها را تا چندین برابر در مقایسه با سولفاتهای سنتی بالا میبرد. ساختار کاهنده یون تیوسولفات با صرف کمترین میزان انرژی متابولیک در گیاه به اسیدهای آمینه سنتزکننده رنگدانههای آنتوسیانین تبدیل شده و در نتیجه، فرآیند رسیدن فیزیولوژیک، انباشت قند و رنگگیری یکنواخت محصول را به شدت کاتالیز میکند.
کالبدشکافی ساختار KTS؛ چرا تیوسولفات فرمول بازی را تغییر میدهد؟
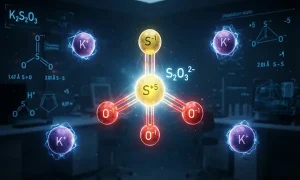
آنیون تیوسولفات (S2O32-) از دیدگاه شیمی معدنی و ساختار بلوری، یک آنالوگ ساختاری یون سولفات (SO42-) است که در آن یکی از اتمهای اکسیژن با یک اتم گوگرد با عدد اکسایش منفی جایگزین شده است. این دگرگونی ساختاری به ظاهر ساده، خواص ترمودینامیکی و سینتیکی فوقالعادهای به مولکول میبخشد. گوگرد مرکزی دارای عدد اکسایش ۵+ و گوگرد متصل به آن (گوگرد لیگاندی یا تیولی) دارای عدد اکسایش ۱- است. این درهمآمیختگی در درجات اکسایش، تیوسولفات را به یک دهنده الکترون ملایم و یک ترکیب فعال از نظر ردوکس (Oxidation-Reduction) تبدیل میکند.
O (-)
   O = S - S (-)
        O
   [ساختار رزونانسی یون تیوسولفات با دو عدد اکسایش متفاوت گوگرد]
حالا به چرخه درونسلولی گیاه نگاه کنید: جذب سولفات (SO42-) توسط ریشه یا کوتیکول برگ آغاز یک زنجیره پرهزینه است. گیاه برای تبدیل سولفات به سولفید جهت ساخت اسیدهای آمینه متیونین و سیستئین، ناچار است ۸ الکترون گرانبها را مصرف کند؛ فرآیندی که وابسته به زنجیره فتوسنتزی، نیازمند فروکسین احیاشده و هیدرولیز حجم چشمگیری از ATP و NADPH است. در شرایطی که میوه در مرحله پر شدن است و گیاه به شدت با کمبود فرآوردههای فتوسنتزی برای تنفس و رشد مواجه است، تحمیل این بار انرژی یعنی کاهش سرعت ساخت ماده خشک.
شیمی فضایی تیوسولفات و صرفهجویی در ارز انرژی گیاه (ATP/NADPH)
داستان از این قرار است که یون تیوسولفات به دلیل دارا بودن گوگرد با درجه اکسایش پایینتر، وارد مسیرهای میانبر سیتوپلاسمی میشود. آنزیم روداناز (Thiosulfate Sulfurtransferase) و سولفیت ردکتاز، پیوند گوگرد-گوگرد (S-S) در تیوسولفات را با مصرف انرژی اندک هیدرولیز میکنند. گوگرد احیاشده به سرعت با O-استیل سرین واکنش داده و سیستئین را شکل میدهد. جذب گوگرد از بستر مولکولی تیوسولفات پتاسیم بیش از ۳۰ درصد انرژی متابولیک کمتری نسبت به فرمولاسیونهای پایهسولفاته طلب میکند و این ذخیره ATP مستقیماً صرف هدایت ترکیبات قندی به مخازن زایشی میشود.
سولفات ورودی: SO4(2-) —> [مصرف 8 الکترون + هیدرولیز بالای ATP] —> سیستئین
تیوسولفات: S2O3(2-) —> [شکست مستقیم پیوند S-S با آنزیم ترانسفراز] —> سیستئین + سولفیت
آیا تا به حال به این فکر کردهاید که چرا برخی مزارع با وجود غرقاب شدن در کودهای سولفاته سنتی، در فاز گرما و تبخیر شدید انتهای فصل از رنگگیری بازمیمانند؟ پاسخ در خفگی متابولیک ناشی از کمبود توان احیا نهفته است. گیاه در تنش گرمایی نمیتواند سولفات بارگذاری کند، چه رسد به اینکه انرژی عظیمی را صرف احیای آن نماید؛ اما KTS دقیقاً همان فرمولی است که این قفل متابولیک را دور میزند.
پیوند همافزا میان کاتیون K+ و آنیون S2O32-
پتاسیم موجود در ترکیب KTS کاملاً قابل حل در آب و بدون تشکیل رسوب در فاز آبی محلول است. پیوند یونی میان کاتیون پتاسیم و آنیون تیوسولفات در محیط آبی به سرعت تفکیک میشود، اما در عین حال، به دلیل ضریب قطبشپذیری بالای آنیون تیوسولفات، لایههای هیدراتاسیون اطراف کاتیون K+ در زمان عبور از کانالهای غشایی دستخوش تغییر شده و جذب همزمان را از طریق همپایههای کاتیونی-آنیونی تسریع میکنند. این حضور همزمان، تعادل الکتروشیمیایی سیتوپلاسم را حفظ کرده و پدیدهای را خلق میکند که ما در اگرونومی مولکولی به آن «سینرژی بدون تنش شوری» میگوییم.
بیودینامیک انتقال مواد فتوسنتزی؛ پتاسیم چگونه ساکارز را به مخزن پمپاژ میکند؟
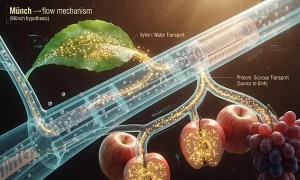
انتقال شیره پرورده از منبع (Source) که عمدتاً برگهای بالغ هستند به سمت مخازن فیزیولوژیک (Sink) که همان میوهها و غدهها میباشند، بر اساس فرضیه جریان فشاری مونش (Münch pressure-flow hypothesis) هدایت میشود. اما دینامیک این پمپاژ بدون حضور یون پتاسیم در کسری از ثانیه متوقف خواهد شد.
سلول مزوفیل (تولید قند)
v (ساکارز)
[غشای سلول همراه آوند آبکش]
(H+) پمپ خروجی <--- [فعالسازی توسط K+]
شیب پروتونی بالا
ناقل SUT1: ورود همزمان [ساکارز + H+] به لوله غربالی
افزایش فشار اسمزی -> ورود آب -> ایجاد جریان تودهای به سمت میوه
مکانیک کارکرد ناقلین SUT و پمپهای پروتونی
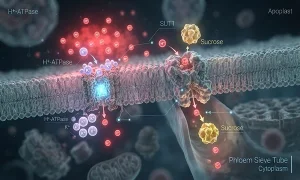
بارگیری ساکارز در لولههای غربالی بافت آبکش (Sieve Elements) در بخش اپوپلاستیک نیازمند فعالیت بیوقفه ناقلین همانتقالدهنده ساکارز/پروتون نظیر SUT1 و SUC2 است. این پمپها به ازای ورود هر مولکول ساکارز به آوند آبکش، یک یون هیدروژن (H+) را در جهت شیب غلظت وارد میکنند. اما برای تداوم این فرایند، یون هیدروژن باید مجدداً به فضای بینسلولی بازگردانده شود. این وظیفه حیاتی بر عهده آنزیم پمپکننده غشایی یعنی H+-ATPase است.
نکته کلیدی ماجرا اینجاست: یون پتاسیم با عمل به عنوان یک فعالکننده آلوستریک برای آنزیم غشایی H+-ATPase، شیب الکتروشیمیایی منفی داخل سلولهای همراه را حفظ کرده و امکان بارگیری حداکثری ساکارز را مهیا میسازد. در صورت کمبود پتاسیم قابلدسترس در بافت مبدأ، بارگیری قند کاهش یافته و ساکارز در سلولهای مزوفیل حبس میشود؛ پدیدهای که منجر به پسزدگی فتوسنتز (Photosynthetic down-regulation) ناشی از انباشت محصول در برگها خواهد شد.
فشار اسمزی شیره پرورده و جریان تودهای توبولهای غربالی
وقتی ساکارز با غلظت بالا وارد لولههای غربالی شد، پتانسیل آب در آوند آبکش به شدت کاهش مییابد (منفیتر میشود). این پدیده آب را از آوند چوبی همجوار به درون آوند آبکش میکشد و باعث ایجاد فشار هیدرواستاتیک (فشار تورژسانس) عظیمی در انتهای مبدأ میشود. در سوی دیگر، در میوه که مخزن نهایی است، ساکارز تخلیه و متابولیزه میشود، پتانسیل آب بالا میرود و آب خارج میگردد.
یون پتاسیم به عنوان فراوانترین کاتیون موجود در شیره پرورده، حدود ۶۰ تا ۸۰ درصد اسمولاریته آوند آبکش را پشتیبانی میکند
معماری بیوشیمیایی رنگگیری میوه؛ نقش پنهان گوگرد در مسیر فنیلپروپانوئید
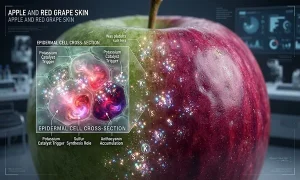
تشکیل رنگدانههای قرمز، آبی و بنفش در پوست میوههایی مانند سیب، انگور، هلو و توتفرنگی ناشی از سنتز و تجمع آنتوسیانینها (نظیر سیانیدین-۳-گلوکوزید و پئونیدین) در واکوئول سلولهای اپیدرمی است. رنگگیری میوه یک رویداد خودبهخودی نیست؛ بلکه یک آبشار چندمرحلهای از سیگنالهای ژنتیکی و واکنشهای بیوشیمیایی است که با قند تغذیه میشود و با متابولیتهای گوگردی جهتگیری میکند.
فنیلآلانین
v <--- [فعالسازی آنزیم PAL توسط K+]
سینامیک اسید
کوماروئیل-کوآ + 3 مولکول مالونیل-کوآ <--- [تأمین شده از Acetyl-CoA گوگردمحور]
v (آنزیم چالکون سنتاز - CHS)
نارینژنین
آنتوسیانین
v <--- [متیلاسیون توسط متیونین و SAM (مسیر گوگرد)]
رنگدانه پایدار واکوئولی
فعالسازی آنزیم PAL و تأمین استیل-کوآنزیم A
سنتز آنتوسیانین از مسیر بیوشیمیایی فنیلپروپانوئید کلید میخورد. اولین آنزیم تعیینکننده سرعت در این شاهراه حیاتی، فنیلآلانین آمونیاک-لیاز (PAL) است. حضور یون K+ رونویسی ژنهای خانواده PAL را تحریک میکند. به موازات آن، ساخت حلقه اصلی فلاونوئیدها نیازمند تراکم یک مولکول ۴-کوماروئیل-کوآ با ۳ مولکول مالونیل-کوآنزیم A توسط آنزیم چالکون سنتاز (CHS) است.
حال بیایید ببینیم گوگرد دقیقاً کجای این زنجیره سوار میشود: کوآنزیم A (Coenzyme A) پروتئینی حاوی گوگرد است که هسته فعال آن از اسیدآمینه سیستئین و ویتامین اسید پانتوتنیک تشکیل یافته است. بدون حضور رادیکال تیول (SH-) فعال در استیل-کوآنزیم A، هیچ زنجیره کربنی برای اتصال به مسیر آنتوسیانین متراکم نخواهد شد. گوگرد تیوسولفات به دلیل در دسترس بودن متابولیک بلافاصله به استیل-کوآ ملحق میشود و این دقیقاً همان پیشمادهای است که بنبست سنتز رنگدانهها را در زمان بلوغ میوه باز میکند.
متیلاسیون آنتوسیانینها توسط متیونین و SAM
رنگدانههای آنتوسیانینی پس از تشکیل، به شدت ناپایدار بوده و مستعد اکسیداسیون نوری هستند، مگر آنکه متیله و گلیکوزیله شوند. متیلاسیون این رنگدانهها توسط آنزیم آنتوسیانین O-متیل ترانسفراز (AOMT) وابسته به دهنده گروه متیل در چرخه سلولی یعنی S-آدنوزیل متیونین (SAM) صورت میپذیرد. بیوسنتز SAM متکی به اسیدآمینه متیونین است که ساختار آن مستلزم تأمین دائم گوگرد فعال سلولی است.
اگر گوگرد کافی نباشد، آنتوسیانینها یا ساخته نمیشوند یا فرم پایدار واکوئولی به خود نمیگیرند. اینجاست که میوه به رنگ مات، قهوهایگون یا دورنگ باقی میماند. با محلولپاشی یا تزریق خاکی تیوسولفات پتاسیم، هم آنزیمهای آغازگر مجهز میشوند و هم ابزار شیمیایی تثبیت رنگ در واکوئول فراهم میآید.
جدول جامع متغیرهای اگروکیمیکال کودهای پتاسیمی
| شاخص فیزیولوژیک و اگروکیمیکال | تیوسولفات پتاسیم (KTS) | سولفات پتاسیم (SOP) | نیترات پتاسیم (NOP) | کلرید پتاسیم (MOP) |
|---|---|---|---|---|
| فرمول شیمیایی | K2S2O3 | K2SO4 | KNO3 | KCl |
| درصد فرمولاسیون (N-P-K+S) | 0-0-25 + 17S (مایع) | 0-0-50 + 18S (پودری) | 13-0-45 | 0-0-60 |
| شاخص شوری (Salt Index) | بسیار پایین (حدود ۴۶) | متوسط (حدود ۴۶) | بالا (حدود ۷۳) | بسیار خطرناک (حدود ۱۱۶) |
| حلالیت در دمای ۲۰ درجه | محلول صددرصد مایع (بینیاز از حلسازی) | حدود ۱۱۰ گرم در لیتر | حدود ۳۱۵ گرم در لیتر | حدود ۳۴۰ گرم در لیتر |
| بار تحمیل نیتروژن در فاز تغییر رنگ | صفر (بدون مداخله رویشی) | صفر | بسیار بالا (۱۳٪ نیتروژن نیتراتی) | صفر |
| هزینه متابولیک احیای گوگرد | فوقالعاده پایین (بهرهوری انرژی بالا) | بالا (نیازمند ۸ الکترون) | فاقد گوگرد | فاقد گوگرد |
| خطر سمیت یون همراه | بدون سمیت (سازگار با بافت) | بیخطر | تجمع ناخواسته نیترات | سمیت شدید کلر در باغات |
| اثر بر نیتریفیکاسیون خاک | کندکننده ملایم نیتریفیکاسیون | خنثی | منبع مستقیم نیترات | منفی بر میکروبیوم خاک |
تعامل تیوسولفات در بستر خاک و آزادسازی ریزمغذیها
در بسیاری از خاکهای آهکی و قلیایی خاورمیانه (با pH بالای ۷.۸ و وجود کربنات کلسیم فعال)، عناصر آهن، منگنز و روی با تشکیل هیدروکسیدها و کربناتهای رسوبی از دسترس ریشه خارج میشوند. بدون آهن، زنجیره انتقال الکترون فتوسنتزی آسیب میبیند و بدون روی، اکسین کافی برای توسعه آوندهای میوه وجود نخواهد داشت.
وقتی KTS از طریق سیستم آبیاری مصرف میشود، وارد فرآیند بیولوژیکی و شیمیایی اکسیداسیون ردوکس میگردد. میکروارگانیسمهای خاک به تدریج آنیون تیوسولفات را به تتراتیونات (S4O62-) و در نهایت به اسید سولفوریک در ابعاد میکروسکوپی اکسید میکنند. این تبدیل بیوشیمیایی نه تنها کل خاک را به شکل مخرب اسیدی نمیکند، بلکه در منطقه میکروریزوسفر (لایه چند میلیمتری اطراف ریشه) ریزافتهای pH ایجاد مینماید:
تولید موضعی یونهای هیدروژن (H+) سبب شکسته شدن پیوند میان رسوبات آهکی و کاتیونهای محبوس آهن (Fe3+) و روی (Zn2+) میشود. علاوه بر این، خصلت احیاکنندگی تیوسولفات باعث تبدیل آهن سه ظرفیتی نامحلول به آهن دو ظرفیتی (Fe2+) میگردد که این همان فرم قابل جذب برای سیستمهای ناقل IRT1 ریشه گیاهان دولپهای است. نتیجه؟ تداوم سبزینگی و کارایی فتوسنتزی برگهای منبع تا آخرین روزهای قبل از چیدن میوه، بدون زردی زودهنگام!
پاسخ صریح به ۵ پرسش بنیادین فیزیولوژی KTS
در شروع مطالعه، پنج سوال استراتژیک مطرح شد. حالا با تکیه بر یافتههای بیوفیزیکی و دادههای ارائهشده، پاسخ مستقیم و بیابهام این ابهامات به شرح زیر است:
- کاهش بار انرژی احیا: برخلاف سولفات که گیاه را مجبور به قربانی کردن ۸ الکترون فتوسنتزی و مولکولهای NADPH میکند، تیوسولفات (S2O32-) به دلیل داشتن گوگرد با بار اکسایش ۱- با واسطه آنزیم ترانسفراز مستقیماً شکسته شده و بدون نیاز به ورود به چرخه احیای پرهزینه، استیل-کوآ و متیونین تولید میکند. این انرژی ذخیرهشده صرف هیدرولیز در پمپهای بارگیری قند میشود.
- پمپاژ الکتروشیمیایی ساکارز: ورود یونهای K+ غشای بافت آبکش را پولاریزه کرده و راندمان فعالیت پمپهای H+-ATPase را افزایش میدهد. ایجاد شیب غلظت بالای هیدروژن، نیروی محرکه لازم را برای پروتئینهای حامل SUT1 فراهم کرده و ساکارز را با فشار علیه شیب غلظت به داخل لوله غربالی پرتاب میکند تا از طریق جریان مونش به میوه سرازیر شود.
- تحریک آبشار رنگگیری واکوئولی: پتاسیم با فعالسازی ژنتیکی آنزیم PAL شروع مسیر را روشن میسازد. در ادامه، گوگرد تیوسولفاتی با مهیاسازی سریع کوآنزیم A برای آنزیم چالکون سنتاز، بلوکهای ساختمانی نارینژنین را سنتز کرده و از طریق S-آدنوزیل متیونین (SAM) پایداری آنتوسیانینها را تثبیت میکند.
- مهار فلاش رویشی پاییزه: KTS برخلاف نمکهای نیتراته، کاملاً عاری از ازت است. علاوه بر این، متابولیسم اکسیداسیون تیوسولفات با مهار ملایم فرایند نیتریفیکاسیون از ورود شوکآور نیتروژن جلوگیری کرده و تعادل C:N را برای تجمیع بریکس و جلوگیری از نرمشدگی پیش از موعد حفظ میکند.
- شیمی ردوکس در ریزوسفر: تیوسولفات در ناحیه ریشه اکسید شده و با رهایش یون هیدروژن در مقیاس میکروسکوپی، پیوند رسوبات فسفاتی و کربناتی را گسسته و با احیای آهن فریک (Fe3+) به فرو (Fe2+)، فقر ریزمغذیها در خاکهای قلیایی را جبران مینماید.
پروتکل اجرایی و استانداردهای مصرف KTS در باغات تجاری
به کار بستن یک ترکیب شیمیایی پیشرفته نیازمند رعایت پنجرههای زمانی حساس رشدی (Phenological Windows) و دوزهای مهندسیشده است؛ در غیر این صورت، بیشترین ظرفیت ژنتیکی گیاه نیز هدر خواهد رفت.
چرخه زمانی مصرف KTS: مرحله فندقیشدن میوه -----> مرحله تغییر رنگ (Veraison) -----> 20 روز قبل از برداشت تأمین K برای تقسیم سلولی تزریق KTS خاکی / محلولپاشی محلولپاشی نهایی (رشد ابعادی میوه) (انفجار انتقال قند و رنگ) (تثبیت بریکس و سفتی بافت)
دوزاژ و زمانبندی تقویمی در محصولات کلیدی
باغات سیب:
هدف: رفع عارضه لکهسیاه، تسریع رنگگیری سیبهای ارقام قرمز (Red Delicious) و افزایش شاخص تردی بافت.
دستورالعمل: مصرف خاکی از طریق کودآبیاری (Fertigation) به میزان ۲۵ تا ۳۵ لیتر در هکتار در زمان آغاز تغییر رنگ (Veraison). محلولپاشی برگی با غلظت ۴ تا ۵ در هزار در دو نوبت (نوبت اول ۴ هفته قبل از برداشت و نوبت دوم ۲ هفته بعد).
تاکستانهای انگور:
هدف: بالا بردن بریکس آبمیوه، یکنواختی رسیدن حبهها در خوشه و جلوگیری از خشکیدگی ساقه خوشه (Waterberry).
دستورالعمل: کودآبیاری به میزان ۲۰ تا ۳۰ لیتر در هکتار همزمان با نرم شدن حبهها. محلولپاشی برگی با غلظت ۳ در هزار بلافاصله پس از ورود به فاز تشکیل رنگدانه.
باغات پسته:
هدف: پر کردن مغز، بهبود وزن صد دانه و تسریع خندانی طبیعی بدون سیاه شدن پوست استخوانی.
دستورالعمل: دو نوبت مصرف خاکی به میزان ۳۰ تا ۴۰ لیتر در هکتار؛ نوبت اول در فاز شروع پر کردن مغز (تیر ماه) و نوبت دوم در اواسط مرداد ماه.
گوجهفرنگی و صیفیجات:
هدف: افزایش ماده خشک (پوره غلیظ)، رنگگیری یکدست بوته و مهار بدشکلیهای ناشی از تنش دمایی.
دستورالعمل: تزریق مداوم در سیستم هیدروپونیک یا نواری به مقدار ۱۰ تا ۱۵ لیتر در هکتار در هر نوبت به صورت هفتگی از زمان رویت نخستین میوههای قرمز.
محدودیتهای اختلاط، کنترل پایداری تانک و pH محلول
یکی از خطاهای مرگبار در مهندسی باغات، عدم درک تعادل شیمیایی تیوسولفات پتاسیم در مخزن اختلاط است. به نکات زیر اکیداً توجه کنید:
- اسیدهای قوی: هرگز KTS را با اسیدهای قوی معدنی (مانند اسید سولفوریک غلیظ یا اسید نیتریک غلیظ) در یک تانک مخلوط نکنید. افت شدید pH به زیر ۵.۵ باعث تجزیه و تخریب ساختار تیوسولفات به گوگرد عنصری کلوئیدی رسوبی و گاز خفهکننده دیاکسید گوگرد (SO2) میشود.
- کلسیمهای با بنیان غیرکلاتی: ترکیب همزمان تیوسولفات پتاسیم با نیترات کلسیم در غلظتهای بالا درون سمپاش باعث به وجود آمدن رسوب گچی تیوسولفات کلسیم یا رسوبات ماتی میگردد که فوراً نازلها را مسدود خواهد ساخت. همواره بین مصرف این دو کود دستکم ۵ روز فاصله بیندازید.
- پایداری فیزیکی: این فرمولاسیون سازگاری شگفتانگیزی با اغلب سموم دفع آفات و کودهای ریزمغذی کلاته (EDTA یا اسیدهای آمینه) دارد؛ مشروط بر آنکه تست جارتست (Jar Test) اولیه پیش از ساخت محلول نهایی انجام گیرد.
سیگنالهای اعتماد، ایمنی و بهرهوری اقتصادی پایدار
ارتقای استانداردهای صادراتی کشاورزی مدرن دیگر با آزمون و خطا به دست نمیآید. میوهای که شاخص قند و پوست آن به درستی فرآوری نشده باشد، در انبارهای سردسیر دستخوش فساد فیزیولوژیک میگردد. استفاده بیرویه از تنظیمکنندههای رشد مصنوعی (نظیر اتفون) برای تسریع مصنوعی رنگ، بافت بافت میوه را تخریب کرده و ماندگاری پس از برداشت را ساقط مینماید.
KTS یک راهکار بیولوژیک درونزا است. این ترکیب به جای تخریب بافت، مکانیسمهای بیوسنتز درونسلولی را به کار میاندازد. کاهش چشمگیر میزان مصرف آب به ازای تولید هر کیلوگرم ماده خشک صادراتی، ثمره بهینهسازی تورژسانس سلولی توسط پتاسیم KTS است. بدون شک سرمایهگذاری بر روی مولکولی که همزمان راندمان کودآبیاری را افزایش داده و سلامت فیتوشیمیایی میوه را بازمیگرداند، برگ برنده کشاورزی حرفهای در شرایط کمآبی و شوری اقلیمی کنونی است.
جمعبندی قطعی و فنی برای اکوسیستم فیزیولوژی گیاهی
تیوسولفات پتاسیم (KTS) صرفاً یک کود پتاسیمی متداول نیست؛ بلکه نسل جدیدی از محرکهای فیزیولوژیک بر پایه بیوشیمی ردوکس به شمار میرود. ساختار این ترکیب از یک سو با بهینهسازی پمپهای هیدروژنی غشا و ناقلین ساکارز، فرآیند انتقال قندها را تسریع میکند و از سوی دیگر، با فراهمآوری منبع گوگردی کمهزینه از منظر بیوانرژتیک، سدهای پیشروی سنتز فنیلپروپانوئیدها، آنزیم PAL و آنتوسیانینها را برمیدارد. بهرهگیری حسابشده از KTS، دستیابی به بریکس بالا، رنگآوری یکدست بدون نیتروژنزدگی و حفظ بافت تجاری میوه را تضمین مینماید.
سوالات متداول (FAQ)
۱. چرا تیوسولفات پتاسیم (KTS) عملکرد بهتری در رنگآوری نسبت به سولوپتاس (SOP) پودری دارد؟
KTS صددرصد محلول و بدون چالش حلالیت است و به دلیل وجود دو اتم گوگرد با ظرفیتهای اکسایشی متمایز، جهت احیا و سنتز اسیدهای آمینه مسیر آنتوسیانین به مقادیر بسیار کمتری از ارز انرژی گیاه (ATP) نیاز دارد. این صرفهجویی متابولیک، انتقال شیره پرورده را شتاب میبخشد.
۲. آیا میتوان KTS را با قارچکشها یا آفتکشها مخلوط کرد؟
بله، با اکثر آفتکشهای رایج سازگار است؛ اما نباید با ترکیبات اسیدی قوی که pH محلول را به زیر ۶ میرسانند، یا فرآوردههای دارای مقادیر بالای مس یا کلسیم نامحلول ترکیب شود. همواره آزمون مقدماتی اختلاط در یک ظرف کوچک الزامی است.
۳. زمان طلایی مصرف تیوسولفات پتاسیم برای میوههای هستهدار و دانهدار چه مرحلهای است؟
شروع فاز تغییر رنگ اولیه میوه (Veraison) تا حدود ۲۰ الی ۱۵ روز مانده به برداشت، زمان طلایی پاسخدهی به KTS است. در این دوره، گیاه حداکثر کشش اسمزی را برای پر کردن مخازن زایشی و سنتز رنگدانهها اعمال میکند.
۴. آیا KTS باعث تغییر اسیدیته یا افزایش شدید شوری خاک میشود؟
خیر. تیوسولفات پتاسیم دارای شاخص شوری بسیار پایینی در مقایسه با سایر منابع پتاسیمی است و اکسیداسیون تدریجی آن در خاک تنها افت جزئی و موضعی در pH ریزوسفر ایجاد میکند که این اتفاق، جذب آهن و سایر ریزمغذیها را تسهیل مینماید.
۵. مصرف برگی این کود کارایی بالاتری دارد یا کاربرد در آب آبیاری؟
هر دو روش بسیار کارآمد هستند. محلولپاشی برگی در اواخر فصل پاسخهای انفجاری و سریعی در سنتز پوسته و رنگدانه ایجاد میکند، در حالی که مصرف خاکی با اثرگذاری بر ریزوسفر و تعادل تبادل کاتیونی، پمپاژ حجیم و مداوم قند و بریکس میوه را به دنبال دارد.
سوالات متداول
تیوسولفات پتاسیم (KTS) چگونه جذب گوگرد و راندمان انرژی گیاه را متحول میکند؟
تیوسولفات پتاسیم به دلیل دارا بودن پیوند مستقیم گوگرد-گوگرد با درجه اکسایش منفی، برخلاف سولفاتهای سنتی نیازی به زنجیره طولانی احیای هشتالکترونی و مصرف گزاف NADPH ندارد. گیاه با هیدرولیز کممصرف تیوسولفات، بیش از سی درصد انرژی متابولیک را ذخیره کرده و مستقیماً صرف پمپاژ فعال قندها به میوه میکند.
مکانیسم اصلی پتاسیم KTS در افزایش بریکس و انتقال شیره پرورده چیست؟
یون پتاسیم در KTS محرک آلوستریک پمپهای پروتونی آوند آبکش بوده و شیب الکتروشیمیایی لازم برای بارگیری همزمان ساکارز توسط ناقلین SUT1 را ایجاد میکند. این پمپاژ فعال اسمزی، پتانسیل آب را تنظیم کرده و طبق جریان فشاری مونش، حجم عظیمی از قندها را به سمت مخازن زایشی و میوهها هدایت مینماید.
چگونه مصرف KTS سبب تحریک سریع و یکنواخت رنگگیری میوه میشود؟
تیوسولفات پتاسیم سنتز آنزیم کلیدی فنیلآلانین آمونیاک-لیاز را القا کرده و به عنوان منبع بیوانرژتیک گوگرد، کوآنزیم A و اسیدآمینه متیونین را برای تشکیل آنتوسیانینها مهیا میسازد. این چرخه بیوشیمیایی با فعالسازی متیلاسیون آنتوسیانین توسط SAM، رنگدانهها را در واکوئول سلولی تثبیت کرده و بدون ایجاد فلاش رویشی، رنگگیری را کامل میکند.