1. مشکلات تغذیه ای و شانکر درختان؛ فرمول بیوشیمیایی نجات تنه از پوسیدگی و ترک
اکتبر 18, 2026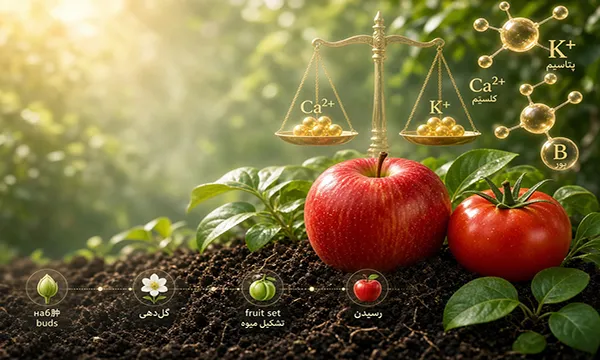
افزایش میوهدهی با مهندسی زمانبندی، تعادل کاتیونی و انتخاب کود
افزایش میوهدهی فرآیندی وابسته به شانس یا تزریق بیرویه ترکیبات تقویتی نیست؛ بلکه مستقیماً حاصل تراز هورمونی، تنظیم نسبت کربن به نیتروژن (C:N) و برقراری یک تقاضای فیزیولوژیک قدرتمند در اندامهای زایشی است.
گیاه برای تبدیل گل به میوه نیازمند جریان یکنواخت عناصر سینرژیست در آوندهای چوبی و آبکشی طی پنجرههای زمانی محدود است. کوچکترین خطا در انتخاب نوع نمک کودی، تداخل یونی یا تزریق دیرهنگام عناصر محرک رشد رویشی، موازنه متابولیکی را برهم زده و پدیدههایی نظیر ریزش گل، سقط جنین میوه و عدم تشکیل بار را به همراه دارد.
حالا ببینید کجای کار در اغلب برنامههای تغذیهای میلنگد: تمرکز افراطی روی “حجم کود مصرفی” بدون در نظر گرفتن “پنجره فیزیولوژیک ورود عنصر”. وقتی یک عنصر غذایی مانند نیتروژن دقیقاً در فاز تقسیم سلولی بیش از حد وارد گیاه شود، سطح هورمون بازدارنده سیتوکینین افت کرده و غلبه جیبرلین موجب طویل شدن بافت شاخه به قیمت ریزش جوانهها تمام خواهد شد.
تغذیه کودی موفقیتآمیز بر چهار ستون استوار است:
- ✔ فاز فنولوژیک دقیق،
- ✔ فرم یونی قابل جذب،
- ✔ نسبت تعادلی عناصر با یکدیگر
- ✔ و ساختار ژنتیکی گیاه میزبان..
ادغام این عوامل باعث میشود فرآیند جابهجایی شیره پرورده از سمت بافت برگ به سمت میوهها با بالاترین نرخ فشار اسمزی صورت پذیرد.
فیزیولوژی انباشت ماده خشک: دینامیک منبع و مخزن در فاز زایشی
میوه در گیاه یک «مخزن یا سینک» مصرفکننده قوی کربوهیدرات، اسید آمینه و آب است. در سمت مقابل، برگهای بالغ به عنوان «منبع یا سورس» عمل میکنند. فرآیند تشکیل و رشد میوه زمانی به حداکثر پتانسیل میرسد که شیب اسمزی لازم برای حرکت ساکارز از طریق آوندهای آبکش به سمت بافت مریستمی میوه برقرار شود.
نکته جالب اینجاست که بازدهی این مسیر ترابری، تابعی از هدایت هیدرولیکی آوندها و فعالیت آنزیمهای تجزیهکننده قند نظیر اینورتاز دیواره سلولی (CWIN) است. این آنزیمها ساکارز ورودی به بافت میوه را به هگزوزها (گلوکز و فروکتوز) میشکنند تا شیب غلظت برای تخلیه بیشتر مواد حفظ شود. کمبود کاتیونهای کوفاکتور مثل پتاسیم یا حضور فرمهای نامناسب نیتروژن، سرعت فعالیت این موتور هیدرولیکی را به صفر میرساند.
پایش و مهار نسبت کربن به نیتروژن (C:N) برای تمایزیابی جوانهها
سیگنال تمایز جوانههای رویشی به زایشی مستقیماً با غلظت قندهای احیاکننده در مقایسه با ترکیبات نیتروژنه در بافت جوانهها کدگذاری میشود. وقتی نسبت کربن به نیتروژن بالا باشد، بیان ژنهای محرک گلدهی مانند FLOWERING LOCUS T (FT) تحریک میشود.
برعکس، با وفور نیتروژن در خاک طی دوره تمایزیابی، این نسبت به شدت افت کرده و سنتز اسیدهای آمینه مسیر ساخت پروتئینهای ساختاری را فعال نگه میدارد. در این سناریو، جوانه به جای تشکیل اندام زایشی، برگ و شاخه تولید میکند. ما برای جلوگیری از این بحران، مدیریت زمانبندی کاهش نیتروژن معدنی خاک پیش از شروع این فاز را به عنوان پیشنیاز قطعی افزایش میوهدهی اعمال میکنیم.
مسیرهای ترابری آپوپلاست و سیمپلاست در تغذیه میوهچه
حرکت املاح به درون میوههای در حال تشکیل از دو مسیر متمایز صورت میپذیرد: مسیر آپوپلاستی (دیواره سلولی و فضاهای بین سلولی) و مسیر سیمپلاستی (از طریق پلاسمودسماتا و سیتوپلاسم). عناصری مانند کلسیم و بور برای تثبیت ساختار بافت میوه، جابهجایی خود را متکی بر مسیر آپوپلاستی و تعریق هدایتشده در آوند چوبی میدانند، در حالی که پتاسیم و فسفر عمدتاً از مسیر سیمپلاستی و آوند آبکشی جابهجا میشوند.
اگر تبخیر و تعریق شاخساره به دلیل رطوبت اشباع هوا، شوری خاک یا خشکی ناگهانی مختل شود، جریان تعریق کاهش مییابد. در این شرایط کلسیم هرگز به میوهچه نخواهد رسید؛ هرچند ریشه غرق در کلسیم باشد.
تعادل کاتیونی و آنیونی؛ مهار آنتاگونیسم بر اساس جدول مالدر
یک باور رایج اما فاجعهبار در میان باغداران این است که اگر کمبودی در میوه دیدیم، کافی است غلظت همان عنصر را در برنامه کودی چند برابر کنیم. خاک و غشای سلولی ریشه، محیطی سرشار از رقابتهای فیزیولوژیک هستند. پدیده برهمکنش عناصر بر پایه «نمودار برهمکنش مالدر» نشان میدهد که وفور یک عنصر میتواند مستقیماً باعث انسداد جذب عنصر دیگر شود.
آیا تا به حال فکر کردهاید چرا با وجود مصرف مقادیر بسیار زیاد سولفات پتاسیم، میوهها در فاز رشدی خود دچار پوسیدگی گلگاه، لکه تلخی یا ترکیدگی میشوند؟ پاسخ در نبرد کاتیونی ریشه نهفته است.
تضاد پتاسیم و کلسیم: قربانی شدن کیفیت فیزیکی پای وزنگیری
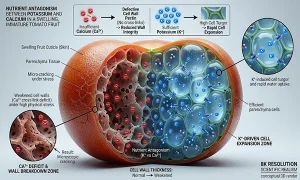
کاتیون پتاسیم (K+) شعاع هیدراته بسیار کوچکی دارد و میل ترکیبی آن با کانالهای انتخابی ورود ریشه به مراتب بالاتر از کلسیم (Ca2+) با بار دوگانه است. بر اساس قوانین بیوفیزیک غشا و روابط آنتاگونیستی نمودار مالدر، افزایش بیرویه غلظت پتاسیم در فاز تقسیم سلولی، با سرکوب مستقیم ورود کلسیم آپوپلاستی، انسجام پکتین تیغه میانی سلولهای میوه را متلاشی کرده و تلفات زایشی را تشدید میکند.
به همین دلیل، استراتژی ما بر تنظیم دقیق نسبت مولی K:Ca استوار است. در ابتدای دوره رشد زایشی، این نسبت باید به سود کلسیم متمایل باشد تا استخوانبندی سلولی میوه شکل بگیرد. پس از تثبیت تعداد سلولها، شیفت به سمت برتری پتاسیم برای شروع اتساع و انباشت اسمزی آب و قند مجاز خواهد بود.
جدول راهبردی برهمکنش عناصر در فازهای کلیدی باردهی
جدول زیر روابط متقابل، فازهای حیاتی و پیامدهای بیتوجهی به تعادل یونی را بر مبنای مکانیسمهای بیوشیمیایی تبیین میکند:
| عنصر هدف | فاز حیاتی مصرف | عنصر رقیب (آنتاگونیست) | مکانیسم تداخل بیوشیمیایی | پیامد فیزیولوژیک عدم تعادل |
|---|---|---|---|---|
| کلسیم (Ca) | شروع گلدهی تا فندقی شدن | پتاسیم (K)، منیزیم (Mg)، آمونیوم (NH4) | رقابت مستقیم در بارگیری به کانالهای کاتیونی غشای پلاسمایی ریشه | ریزش زودهنگام میوهچه، لکه چوبپنبهای و بافت اسفنجی |
| پتاسیم (K) | فندقی شدن تا برداشت | کلسیم (Ca)، منیزیم (Mg)، سدیم (Na) | غلبه بر بارگیری آپوپلاست و سرکوب ساخت کلروفیل از طریق دفع منیزیم | توقف درشتشدن میوه، سوختگی حاشیه برگ و افت بریکس |
| فسفر (P) | تورم جوانه و پس از گردهافشانی | روی (Zn)، آهن (Fe) | رسوب متقابل و تشکیل ترکیبات فسفات روی و فسفات آهن نامحلول در خاک | کوتاهی میانگرهها، عدم تشکیل بذر زنده و توقف توسعه ریشه |
| روی (Zn) | تورم جوانه و ظهور گلبرگ | فسفر بالا، مس (Cu) | برهم خوردن نسبت P/Zn در غشای سلولی و غیرفعالسازی آنزیمهای اکسینساز | جارویی شدن نوک شاخه، کوچک ماندن اندازه میوه و بدشکلی گل |
| بور (B) | تورم جوانه تا باز شدن گل | کلسیم مازاد خاک | تشکیل بوراتهای کلسیم کممحلول در خاکهای قلیایی و آهکی | عدم جوانهزنی لوله گرده، سقط جنین میوه و ترکیدگی درونی |
بالانس فسفر، روی و بور در مرحله حیاتی لقاح و دگرگشنی
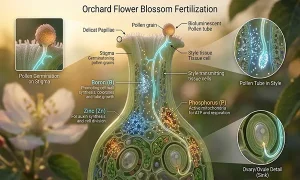
گردهافشانی موفق نیازمند سرعت بالای رشد لوله گرده برای رسیدن به تخمدان پیش از زوال آن است. این اتفاق منحصراً متکی به فعالیت شیمیایی بور و روی خواهد بود. روی پیشساز بیوسنتز اسید آمینه تریپتوفان است که پیشماده سنتز ایندول-۳-استیک اسید (هورمون اکسین) محسوب میشود. اکسین ترشح شده توسط دانه گرده، کشش متابولیکی لازم برای هدایت مواد به سمت کلاله را پدید میآورد.
از دیگر سو، یون بور با اتصال به مولکولهای رامنوگالاکتورونان-II، شبکهسازی ساختاری دیواره سلولی لوله گرده را پایدار کرده و به عنوان سوئیچ بیوشیمیایی در انتقال قندها جهت تغذیه گامتوفیت نر عمل میکند. فسفر نیز حامل آدنوزین تریفسفات (ATP) مورد نیاز این فرآیند متحرک با انرژی بالاست. نبود هر یک از این سه عنصر در زمان دقیق گردهافشانی، حتی اگر شرایط جوی ایدهآل باشد، منجر به ناباروری گلها و ریزش فاجعهبار پس از گلدهی خواهد شد.
تقویم زمانی کوددهی بر پایه فنولوژی گیاه (Phenological Window)
کوددهی بر اساس تقویم شمسی یکی از خطاهای رایج در باغبانی نوین است. گیاه با تقویم کار نمیکند، بلکه با مراحل نموی و دماهای تجمعی (GDD) پیش میرود. هر مرحله فنولوژیک، نیاز متابولیکی خاصی دارد که غفلت از آن به معنای از دست رفتن پتانسیل عملکرد است.
────► کلسیم نیترات مایع + فسفر ریشهای
────► فروتست دوم جهت ذخیرهسازی مریستمی
فاز تورم جوانه تا پس از گلدهی (فروتست بهاره)
در زمان تورم جوانه، دمای خاک هنوز برای فعالیت تارهای کشنده ریشه بسیار پایین است. فعالیت تعریقی گیاه نیز به دلیل عدم وجود برگ به صفر نزدیک است. در این برهه، درخت باید صددرصد متکی بر ذخایر جذبشده از سال قبل باشد.
محلولپاشی ترکیبی هدفمند حاوی ازت آمیدی یا نیتراتی با غلظت پایین، روی کلاته و بور اتانولآمین دقیقاً در این پنجره صورت میگیرد. این ترکیب به طور مستقیم جذب پوسته نازک جوانهها و بافت کاسبرگها شده و غلظت عناصر حیاتی را در لوله گرده بالا میبرد. در فاز باز شدن کامل گلها، ورود ترکیبات کودی شور یا اسیدی متوقف میشود تا سوختگی کلاله رخ ندهد.
فاز فندقی شدن تا سخت شدن هسته: تقسیم سلولی در برابر انبساط
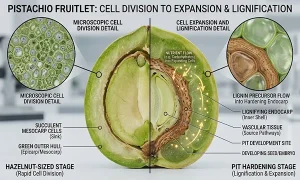
داستان از این قرار است: اندازه نهایی یک میوه توسط دو فاکتور تعیین میشود؛ ابتدا «تعداد سلولهای تشکیلشده» و سپس «میزان اتساع این سلولها». فاز فندقی شدن، آخرین فرصت زیستی گیاه برای تکثیر و تقسیم میتوزی سلولها است.
در این بازه، حضور کلسیم و فسفر ضروری است. فسفر انرژی لازم برای تقسیم سلول را از طریق چرخههای فسفوریلاسیون تامین میکند و کلسیم بلافاصله صفحات سلولی تازه ایجاد شده را تحکیم میبخشد. اگر در فاز فندقی شدن کمبود کلسیم رخ دهد، تعداد سلولها کم باقی میماند. با تزریق شدید پتاسیم در مراحل بعدی، سلولهای اندک مجبور به کشیدگی بیش از حد میشوند که پدیده فیزیولوژیک ترکیدگی پوست، لهیدگی در انبار و پوک شدن بافت مرکزی را رقم میزند.
فاز پر شدن میوه تا برداشت: بارگیری آوند آبکشی با پتاسیم
با ورود به فاز انبساط سلولی، تقسیمات متوقف شده و کشیدگی دیواره بر اثر تورژسانس آب آغاز میشود. اینجاست که پتاسیم باید بازیگر نقش اول شود. پتاسیم با ورود به واکوئل سلولهای میوه، پتانسیل اسمزی را کاهش داده و آب را به درون بافت سلولی میکشد.
آنزیمهای سنتز نشاسته و تبدیل آن به گلوکز و فروکتوز برای کارایی اپتیموم، نیازمند غلظت بالای یونهای K+ در سیتوسول هستند. موازنه کوددهی در این مرحله به سمت کودهای با درصد بالای پتاسیم و عاری از نیتروژن آزاد تمایل پیدا میکند تا رنگآوری آنتوسیانینها، ضخامت پوست میوه و تجمع بریکس قند بدون تاخیر فیزیولوژیک تکمیل شود.
راهنمای انتخاب فرمولاسیون کود: کلاتها، نمکها و فسفیتها
یک نمک ساده سولفاته رفتار متفاوتی در مقایسه با یک کمپلکس کلاته در بستر خاک از خود بروز میدهد. انتخاب فرمولاسیون باید با توجه به pH خاک، درصد کربنات کلسیم معادل (آهک) و شوری (EC) بستر تعیین گردد تا راندمان کود به حداکثر برسد.
کلاتهای باثبات (EDDHA,EDTA,IDHA) در برابر نمکهای سولفاته
در خاکهای آهکی ایران با pH بالای ۷.۵، مصرف نمکهای فلزی خالص مانند سولفات آهن یا سولفات روی از طریق آبکود یک اشتباه فنی است؛ این ترکیبات در محیط قلیایی فوراً رسوب کرده و به هیدروکسیدهای نامحلول تبدیل میشوند.
برای تغذیه ریشهای آهن در این بسترها، تنها کلات با بنیان EDDHA و ایزومر ارتو-ارتو بالا قادر است یون آهن را تا خاکهای با pH بالای ۹ محافظت کند. برای عناصری مانند روی، منگنز و مس در فازهای رشد زایشی، استفاده از کلاتهای سنتتیک EDTA یا کلاتهای نوین با تجزیهپذیری زیستی مانند IDHA بازدهی جذب برگی و ریشهای را ارتقا میدهد. فرمولاسیونهای کاتیونی ترکیب شده با اسیدهای آمینه یا اسید فولویک نیز به عنوان نفوذدهندههای اختصاصی از لایههای مومی بافت گیاه به کار گرفته میشوند.
استراتژی بر اساس ماهیت گیاه: درختان خزاندار در برابر سبزی و صیفی
نیاز غذایی یک درخت سیب یا پسته که سالی یکبار بار میدهد و چرخه زمستانگذرانی دارد با بوته گوجهفرنگی یا خیار گلخانهای که همزمان در حال گلدهی، باردهی و رشد رویشی است، تفاوت بنیادین دارد. شناخت الگوی رشد فیزیولوژیک گیاه پایه هر برنامه کودی است.
└─ الگوی باردهی تکفاز ──► تمرکز شدید بر فاز پس از برداشت (تغذیه جوانههای سال بعد)
└─ الگوی باردهی مداوم ──► تزریق پیوسته تعادل مولی عناصر (حفظ نسبت همزمان N:K و K:Ca)
مهار پدیده سالآوری (Alternate Bearing) با تغذیه پس از برداشت
در درختان میوه خزاندار، رقابت شدیدی بین بارهای روی درخت و جوانههای زایشی سال بعد برای تصاحب آسیمیلاتها شکل میگیرد. در سالهای پربار، میوهها تمام ذخیره هیدروکربنی و املاح را مصرف میکنند و جوانههای سال بعد از گرسنگی فیزیولوژیک عقیم باقی میمانند.
برای شکستن چرخه سالآوری، کلیدیترین فاز تغذیهای “فروتست پس از برداشت” است. زمانی که میوه چیده شده اما برگها هنوز سبز هستند، ریشهها و برگها باید مقادیر بالایی از ازت، بور، روی و فسفر را جذب و به سمت جوانهها و طوقه هدایت کنند. این جریان ذخیرهسازی، پتانسیل زایشی سال بعد را تضمین میکند.
تنظیم بار میوه در گیاهان نامحدود رشد (Indeterminate Crops)
در بوتههای گوجهفرنگی، فلفل دلمهای یا خیار با رشد نامحدود، ما با حضور همزمان گل، میوهچه، میوه رسیده و برگهای جوان مواجهیم. در این گیاهان ما نمیتوانیم ناگهان نیتروژن را قطع و منحصراً پتاسیم تزریق کنیم؛ چرا که رشد انتهایی بوته متوقف شده و گلهای طبقات بالایی سقط میشوند.
راهکار علمی در اینجا پایش مداوم نسبتهای کاتیونی و آنیونی در محلول غذایی هیدروپونیک یا آبکود است. حفظ نسبت وزنی N:K در حدود ۱ به ۱.۸ در زمان اوج برداشت همراه با تنظیم روزانه نسبت K:Ca روی مقدار متعادل، این امکان را فراهم میکند که بوته همزمان با بزرگ کردن میوههای پایینی، توان تشکیل و تثبیت گلهای جدید در طبقات بالا را حفظ کند.
پیامدهای خطای زراعی: سمیت، شوری و ریزشهای فیزیولوژیک
اشتباه در تغذیه میوه عواقبی دارد که اصلاح آن گاهی ماهها طول میکشد. تزریق بیش از اندازه پتاسیم یا نیتروژن به خاک، علاوه بر مسمومیت مستقیم یونی، فشار اسمزی محلول خاک (EC) را تا سطوحی فراتر از آستانه تحمل ریشه بالا میبرد. با بالا رفتن شوری، پتانسیل آب خاک به شدت منفی شده و آب به جای ورود به ریشه، بر اساس پدیده اسمز معکوس از بافتهای نرم ریشه به سمت خاک تخلیه میشود.
علاوه بر این پدیده، مصرف اشتباه فرمهای آمونیومی نیتروژن در فاز تشکیل میوه، اسیدیته موضعی اطراف ریزوسفر را تغییر داده و ورود کلسیم را متوقف میسازد. از طرفی محلولپاشیهای سنگین با نمکهای دارای ناخالصی کلر یا سدیم در میانه روز و زیر آفتاب شدید، پارگی کوتیکول، سوختگی مزوفیل برگ و در نتیجه ریزش فاجعهبار میوهها را به همراه دارد. تکیه بر تستهای آنالیز برگ (DOP و DRIS) و آزمایش منظم خاک تنها سد دفاعی در برابر این خطاهای مدیریتی است.
سوالات متداول پیرامون افزایش میوهدهی باغات (FAQ)
۱. بهترین زمان برای اجرای برنامه فروتست چه موقع است؟
فروتست در دو مرحله کلیدی اعمال میشود: بار اول در اواخر تابستان یا اوایل پاییز درست پس از برداشت محصول تا عناصر در جوانهها ذخیره شوند؛ بار دوم در اوایل بهار هنگام تورم جوانهها و پیش از باز شدن گلها جهت تامین نیاز فرآیند گردهافشانی و لقاح.
۲. چرا مصرف کودهای ازته در زمان باز شدن گلها باعث ریزش میوه میشود؟
نیتروژن با تحریک سنتز اسیدهای آمینه و هورمون جیبرلین، تمام جریان کربوهیدرات را به سمت توسعه شاخهها و برگهای جدید منحرف میکند. این تخلیه ناگهانی انرژی و فیتوهورمون از کاسبرگها و کلاله، لایه جداکننده (Abscission Zone) دمگل را فعال کرده و گلها و میوهچهها میریزند.
۳. تفاوت محلولپاشی کلسیم با مصرف خاکی آن در سفتی بافت میوه چیست؟
کلسیم عنصری غیرمتحرک در آوند آبکش است و از راه خاک تنها همراه با جریان تعریق به سمت اندامهای با تعریق بالا (برگها) میرود، نه میوهها. محلولپاشی، کلسیم را مستقیماً روی پوست میوه قرار میدهد تا از طریق عدسکها و روزنهها نفوذ کرده و دیواره سلولی را مستحکم سازد.
۴. نقش پتاسیم در افزایش وزن میوه چیست و آیا مصرف نامحدود آن مجاز است؟
پتاسیم با کاهش پتانسیل اسمزی در واکوئلها، کشش آب به داخل میوه و فعالیت آنزیمهای انباشت قند را تشدید میکند. مصرف نامحدود آن هرگز مجاز نیست؛ زیرا افزایش غلظت پتاسیم جذب کلسیم و منیزیم را متوقف کرده و میوه را دچار ناهنجاریهای بافتی، کاهش خاصیت انبارداری و پوسیدگی فیزیولوژیک میکند.
۵. چگونه میتوان در خاکهای آهکی با pH بالا مانع تثبیت و عدم جذب عناصر باردهی شد؟
اصلاح موضعی pH در منطقه ریشه با کودهای گوگردی باکتریدار و اسیدهای آلی (اسید هیومیک و فولویک)، همراه با انتخاب کلاتهای پایدار نظیر Fe-EDDHA و کمپلکسهای کلاته برای عناصر ریزمغذی، از رسوب املاح در پیوند با یونهای کربنات و هیدروکسیل جلوگیری میکند.
SEO Featured Snippet
سوالات متداول
بهترین زمان محلولپاشی فروتست برای افزایش میوهدهی چه موقع است؟
بهترین زمان اجرای برنامه فروتست در دو مرحله طلایی است: نخست در اواخر تابستان یا اوایل پاییز بلافاصله پس از برداشت محصول جهت ذخیرهسازی عناصر در جوانهها، و مرحله دوم در اوایل بهار هنگام تورم جوانهها پیش از باز شدن گلها تا گردهافشانی و تشکیل میوه به حداکثر برسد.
چرا مصرف کودهای ازته در زمان گلدهی باعث ریزش گل و میوه میشود؟
مصرف زیاد کودهای ازته در فاز گلدهی، نسبت کربن به نیتروژن را کاهش داده و با تحریک سنتز جیبرلین، قندها را به سمت رشد شاخساره منحرف میکند. این محرومیت غذایی در گلها موجب فعال شدن لایه جداکننده در دمگل و در نتیجه ریزش شدید گلها و سقط میوهچه میشود.
تفاوت نقش کلسیم و پتاسیم در تشکیل و درشت شدن میوه چیست؟
کلسیم در فاز ابتدایی (فندقی شدن) دیواره سلولی را تحکیم کرده و تعداد تقسیم سلولی را افزایش میدهد؛ در حالی که پتاسیم در فاز ثانویه با تجمع اسمزی قند و آب درون واکوئلها، اتساع و درشتشدن سلولها را ممکن میسازد. مصرف همزمان نامتعادل آنها موجب آنتاگونیسم کاتیونی و ناهنجاری بافتی میگردد.