
1.کاهش جذب روی در خاکهای آهکی؛ تحلیل مکانیسمها و راهکارها
نوامبر 7, 2026
فهرست مطالب
- 1 تفاوت کود بور، کلات بور و بور اتانولآمین در تغذیه گیاه
- 1.1 ماهیت بور در گیاه: از متابولیسم دیواره تا محدودیتهای فیزیولوژیک
- 1.2 کلات بور؛ واقعیت علمی یا خطای نامگذاری در بازار کود؟
- 1.3 بور اتانولآمین؛ مهندسی پیوند آلی برای جذب حداکثری
- 1.4 ماتریس مقایسه تخصصی: فرمهای سهگانه بور در ترازوی آزمایشگاهی
- 1.5 مدیریت میدانی، اصول محلولپاشی و پیشگیری از سمیت
- 1.6 جمعبندی استراتژیک برای متخصصان تغذیه گیاهی
- 1.7 سوالات متداول (FAQ)
- 1.7.1 ۱. چرا اصطلاح کلات بور از دیدگاه شیمیایی صحیح نیست؟
- 1.7.2 ۲. مزیت اصلی بور اتانولآمین نسبت به اسید بوریک معمولی چیست؟
- 1.7.3 ۳. آیا میتوان بور اتانولآمین را با کودهای کلسیمی مخلوط کرد؟
- 1.7.4 ۴. بهترین زمان محلولپاشی بور برای افزایش تشکیل میوه (فروتست) چه موقع است؟
- 1.7.5 ۵. چگونه مسمومیت ناشی از کود بور را در باغات تشخیص دهیم؟
- 1.8 پاسخهای کلیدی و فوری (Voice Search & Featured Snippets)
تفاوت کود بور، کلات بور و بور اتانولآمین در تغذیه گیاه
تفاوت کود بور، کلات بور و بور اتانولآمین در سه مؤلفه بنیادین ساختار پیوندی، میزان انحلالپذیری و توانایی نفوذ از موم کوتیکول خلاصه میشود. اسید بوریک و نمکهای بور ترکیبات معدنی ساده با میل هیدرولیز بالا هستند، در حالی که ترکیب موسوم به کلات بور در واقع یک کمپلکس مشتقشده از الکلهای قندی است. نسخه اتانولآمین با پیوند دادن رادیکال آلی، علاوه بر تنظیم بار الکتریکی، فشار اسمزی قطره محلول را روی اپیدرم کاهش داده و بازدهی جذب را چند برابر میکند.
کودهای حاوی عنصر بور نقشی بنیادین در تعیین باروری دانههای گرده، تثبیت ساختار پروتوپلاستی و فعالسازی فرایند تقسیم سلولی در مریستمهای انتهایی بازی میکنند. اگر در محاسبات فرمولاسیون باغی و زراعی نوع پیوند شیمیایی حامل بور نادیده گرفته شود، هدررفت سرمایه و سمیت ناخواسته در اندامهای هوایی رقم خواهد خورد. انتخاب حامل مناسب به درک سینتیک عبور یونی، سازوکار جابهجایی بور در سیستم انتقال و چگونگی مهار تبلور نمک بر پهنک برگ بستگی دارد.
ماهیت بور در گیاه: از متابولیسم دیواره تا محدودیتهای فیزیولوژیک
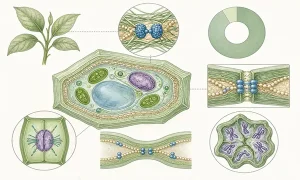
بور عنصری متمایز در جدول عناصر بیولوژیک گیاهی است. این متالوئید نقشی شبهکاتالیزوری ندارد، بلکه ماهیت آن مستقیماً در ساختار بیوپلیمرهای ساختاری سلول ادغام میشود. ۹۰ درصد کل بور مستقر در اندامهای سبز گیاه، در دیواره سلولهای بافت پارانشیم و آوندها قفل شده است. با کمبود این عنصر در زمان تفکیک میتوزی، سلولها قادر به تکثیر هندسی نبوده و دیواره به سرعت تغییر فرم میدهد.
نکته اساسی، چگونگی پیوند زدن این شبهفلز در فاز رویشی است. اگر به برگهای جوان در زمان باز شدن جوانه دقت کنید، بیشترین تمایل بافتی برای اتصال به مولکولهای بوراتی آزاد مشاهده میشود؛ اندامهای رویشی جوان به دیوارههای منعطف نیاز دارند و بور تنظیمکننده الاستیسیته این ماتریس فیبروزی به شمار میرود.
پیوند رامنودوگالاکتورونان-II و معماری سلولی
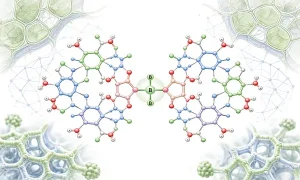
ماتریس پکتین در دیواره نخستین سلول گیاهی ساختار سادهای ندارد. این سیستم ژلاتینی و مشبک متکی به زنجیرههای هموگالاکتورونان و ساختارهای چندشاخه رامنودوگالاکتورونان-II یا به اختصار RG-II است. کمپلکس دیاستر دیبورات پکتیکی پایدارترین پیوند سلولی بور در دیواره است که استحکام فیزیکی و تخلخل مکانیکی غشای آپوپلاستی گیاه را دیکته میکند. بورات دیمری با متصل کردن دو مولکول رامنودوگالاکتورونان-II از طریق زنجیرههای کربوهیدراتی متصل به قند آپیوز، یک شبکه سهبعدی مقاوم پدید میآورد.
بدون حضور پایدار بور در لحظه ساخته شدن دیواره سلولی، این پیوند استری شکل نگرفته و منافذ دیواره دستخوش انبساط غیرطبیعی میشوند. پیامد این اختلال مولکولی، ناتوانی سلول در تحمل تنش تورژسانس، توقف نمو لوله گرده در فرآیند لقاح و بدشکلیهای فیزیولوژیک در بافت میوه خواهد بود.
[مونومر RG-II] ─── (آپیوز) ─── [B(OH)4]- ─── (آپیوز) ─── [مونومر RG-II]
│
(تشکیل دیمر بورات دیاستر)
راز جابهجایی بور در آوند آبکش: سوکروز در برابر قندهای الکلی
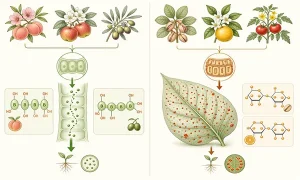
شاید بارها شنیده باشید که «بور عنصری کاملاً غیرمتحرک در گیاه است و قابلیت انتقال از برگهای پیر به بافتهای مریستمی را ندارد.» این یک حکم کلی و از نظر فیزیولوژی گیاهی تا حدی نادقیق است. میزان پویایی بور بستگی تام به نوع قند هادی در آوند آبکش گونه هدف دارد.
در گیاهانی چون هلو، زردآلو، سیب و زیتون که قندهای کربوهیدراتی را به فرم سوربیتول، مانیتول یا دولسیتول ترابری میکنند، مولکول بور میتواند با پیوندهای پایدار دیاستر به این پلیالها بچسبد. حاصل این فرآیند، پدید آمدن کمپلکس بور-پلیال خنثی با بار منفی بسیار پراکنده است که با سهولت تمام در شیره پرورده حرکت کرده و به بافتهای جوان هدایت میشود. اما در گونههایی نظیر پسته، مرکبات، گردو و گوجهفرنگی که حامل کربوهیدراتی اصلی در آوند آبکش سوکروز است، گروههای الکلی در فضاگیری هندسی مناسبی برای پایدارسازی این کمپلکس قرار ندارند؛ در نتیجه، بور وارد شده به برگ، با خروج آب ترادمش تبخیر نشده و همانجا رسوب میکند.
کلات بور؛ واقعیت علمی یا خطای نامگذاری در بازار کود؟
اگر در بازار نهادههای کشاورزی قدم بزنید، بدون شک با محصولاتی به نام «کلات بور EDTA» یا «اسید آمینه کلات بور» مواجه شدهاید. آیا از دیدگاه شیمی آلی و معدنی میتوان پیوندی پایدار میان یک آنیون یا متالوئید با یک عامل کیلیت ششدندانه کاتیونی متصور شد؟ پاسخ قطعی و علمی، منفی است.
بور با شعاع کووالانسی کوچک و رفتار شبهفلزی، کششی برای پذیرش ساختار کمپلکس سنتی ندارد. بستهبندیهایی که با چنین عناوینی توزیع میشوند، صرفاً محلولهای اسید بوریک هستند که با مواد آلی متفرقه مخلوط شدهاند، بی آنکه پیوند کوئوردیناسیونی کلاتاسیون در آنها رخ داده باشد.
شیمی پیوند کوئوردیناسیون: چرا بور با EDTA و اسیدهای آمینه کلات نمیشود؟
واژه کلاته شدن (Chelation) از واژه یونانی چله (Chele) به معنای چنگال خرچنگ میآید؛ بدین معنا که یک لیگاند ارگانیک، یون مرکزی فلز را با چندین پیوند هماهنگ دونور داتیو (معمولاً اکسیژن و نیتروژن) احاطه کند. برای اینکه چنین حلقهای تشکیل شود، یون مرکزی باید کاتیونی با اوربیتالهای خالی d یا f نظیر
Fe^(2+),
Fe^(3+),
Zn^(2+)
یا
Cu^(2+)
باشد.
بور در محلول آبی دارای اوربیتال d نیست. این عنصر به شکل اسید ضعیف لوئیس (
B(OH)_3
) ظاهر میشود و تمایل دارد با دریافت یک یون هیدروکسیل به آنیون تترابورات تبدیل گردد:
لیگاندهایی نظیر EDTA، DTPA یا آمینواسیدهای ساده توانایی تشکیل حلقه پایدار با فرمهای آنیونی یا بدون بار اسید بوریک را ندارند؛ اگر EDTA را به اسید بوریک بیفزایید، هیچ واکنشی رخ نخواهد داد و پس از تبخیر حلال، هر دو ترکیب به صورت نمکهای مستقل رسوب خواهند کرد. بنابراین برچسبهای بازاری با عنوان کلات سنتی، پایهای در ترمودینامیک شیمیایی ندارند.
کمپلکسهای واقعی پلیال: نحوه ساخت پیوندهای پایدار سیس-دیاول
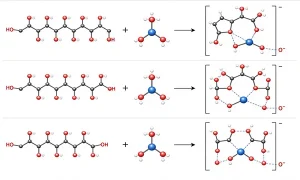
پس چه ساختاری میتواند بور را در یک بستر آلی مهار کند؟ راهکار شیمی در سنتز کمپلکسهای پلیال (Polyol Complexes) نهفته است. مولکولهای دارای گروههای هیدروکسیل مجاور هم در موقعیت فضایی سیس (cis-1,2-diols) یا سیس-۱،۳-دیاول، میل ترکیبی شدید به برقراری پیوند استری با بور دارند:
R─CH─OH                           R─CH─O         O─CH─R
         \                                \       /
          + B(OH)3  +  HO─CH─R'  ───>      B(-)  +  H+ + 3 H2O
         /                                /       \
  R─CH─OH                           R─CH─O         O─CH─R'
وقتی قندهای الکلی چندعاملی نظیر مانیتول، سوربیتول، زایلیتول یا حتی مولکولهای دارای پیوند دیاول آلی مانند فروکتوز در نسبت مولی معین با اسید بوریک وارد واکنش میشوند، کمپلکس حلقوی بار منفی ایجاد میکنند. این کمپلکس پایدار است و اجازه رسوب به بور نمیدهد، حلالیت را در آبهای سخت بالا نگه میدارد و بر خلاف نمکهای خام، نفوذ بهتری از روزنههای گیاهی نشان میدهد. فرم موسوم به کلات واقعی بور در متون تحقیقاتی، منحصراً ناظر بر این دسته از استرهای حلقوی است.
بور اتانولآمین؛ مهندسی پیوند آلی برای جذب حداکثری
بور اتانولآمین سنتز هدفمندی از برهمکنش میان اسید بوریک معدنی و مونواتانولآمین (MEA – با فرمول
H_2N-CH_2-CH_2-OH
) در غلظتهای صنعتی کنترلشده است. هدف از ترکیب این دو ماده، ایجاد یک نمک-کمپلکس قطبی آلی است که غلظت بالای عنصر فعال (حدود ۱۰ تا ۱۱ درصد وزنی عنصر بور خالص معادل ۱۵۰ گرم در لیتر) را همراه با خواص بیوفیزیکی بینظیر برای نفوذ برگی به ارمغان آورد.
این فرمولاسیون نه یک نمک معدنی ساده است و نه تنها یک اسید بوریک حلشده؛ این مولکول به عنوان یک فرم هماهنگ پیشرفته در کشاورزی مدرن عمل میکند.
سینتیک جذب از کوتیکول و روزنه با وساطت مونواتانولآمین
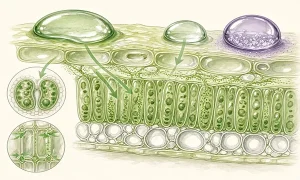
پهنک برگ با لایهای آبگریز متشکل از مومهای اپیکوتیکولی، کوتین و زنجیرههای کربوکسیلیک اسید آلیفاتیک پوشانده شده است. کودهای معدنی مانند بوراکس یا اسید بوریک خالص به دلیل قطبیت بالا و تشکیل سریع بلور در برابر این سد دفاعی متوقف میشوند. مولکول مونواتانولآمین در ساختار بور اتانولآمین از دو بخش فعال تشکیل شده است: یک سر آبدوست با پیوند آمینی و الکلی که با هسته بور پیوند دارد و یک دم کوتاه کربنی که سازگاری لیپوفیلیک ایجاد میکند.
بور اتانولآمین با کاهش تنش سطحی قطره روی کوتیکول مومی و به تعویق انداختن تبلور نمک، راندمان جذب برگی بور را تا ۳ برابر نسبت به اسید بوریک و نمکهای سدیمی افزایش میدهد. آمین فعال در ساختار به عنوان سورفکتانت طبیعی رفتار کرده، زاویه تماس قطره را بر روی پهنک برگ به حداقل رسانده و سطح مؤثر تبادل را توسعه میدهد. سپس تترابوراتهای محافظتشده از طریق مسیر آپوپلاستیک و روزنهها بدون مقاومت سلولزی وارد چرخه سوختوساز سلول گیاهی میشوند.
زاویه تماس قطره روی کوتیکول برگ: ┌───────────────────────────┐ ┌───────────────────────────┐ │ کود بور ساده معدنی │ │ بور اتانولآمین │ │ │ قطره آب │ │ │ ╭───────────────╮ │ │ زاویه تماس > ۹۰° │ │ زاویه تماس < ۳۰° │ │ (نفوذ کم، خشک شدن سریع)│ │ (پهنشدگی بالا، نفوذ سریع) │ └───────────────────────────┘ └───────────────────────────┘
مدیریت تنش رطوبتی قطره: سازوکار نمبینی و پایداری برگی
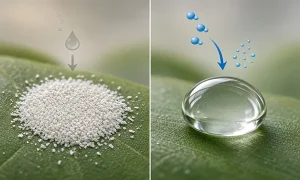
یکی از خطاهای رایج در تغذیه برگی، عدم توجه به پدیده تبخیر قطره روی برگ است. هنگامی که یک نمک معدنی بور محلولپاشی میشود، رطوبت به سرعت تبخیر شده و نمک به فرم بلور خشک درمیآید. گیاه توانایی مصرف فرم بلورین را از روی اپیدرم ندارد؛ در این شرایط بور بیرون سلول باقی میماند تا زمانی که باران ببارد و آن را بشوید.
مونواتانولآمین در فرمولاسیون بور اتانولآمین مادهای شدیداً جاذب رطوبت (Hygroscopic) با نقطه نمبینی یا رطوبت بحرانی مایع (Point of Deliquescence: POD) بسیار پایین است. حتی در رطوبت نسبی پایین هوا (مثلاً ۴۰ درصد در باغات مناطق گرمسیری)، این ترکیب آب موجود در محیط را جذب کرده و اجازه خشک شدن سریع قطره را نمیدهد. در نتیجه، بور در فاز سیال و قابل جذب برای چندین ساعت متوالی فعال میماند؛ عاملی که مانع از هدررفت و تثبیت بیاثر کود خواهد شد.
ماتریس مقایسه تخصصی: فرمهای سهگانه بور در ترازوی آزمایشگاهی
برای اتخاذ تصمیم دقیق در انتخاب کود، باید پارامترهای شیمیایی و میدانی این سه فرمولاسیون را به صورت مقایسهای بررسی کرد. جدول زیر خلاصه رفتاری سه ترکیب بور، کلات پلیال و بور اتانولآمین را نشان میدهد:
| پارامتر فنی و شیمیایی | کود بور معدنی (اسید بوریک / بوراکس / سولوبور) | کلات بور واقعی (کمپلکس الکلهای قندی / پلیال) | بور اتانولآمین (Boron Ethanolamine) |
|---|---|---|---|
| درصد عنصر فعال (B) | ۱۱ تا ۲۰ درصد (متغیر بر اساس فرمولاسیون) | ۵ تا ۸ درصد | ۱۰ تا ۱۱ درصد (حدود ۱۵۰ گرم در لیتر) |
| ماهیت پیوند شیمیایی | پیوند کووالانسی معدنی یا یونی سست | استر حلقوی بورات با پیوند دیاول آلی | کمپلکس پایدار متالوئید با مونواتانولآمین |
| رفتار در آب سخت (پایداری فاز) | مستعد رسوب با کلسیم و منیزیم (CaB_4 O_7) |
پایداری بسیار خوب در دامنه وسیع سختی آب | پایداری عالی به دلیل خصلت بافری آمین |
| سرعت نفوذ از کوتیکول | بسیار کند و متکی بر جذب غیرفعال آپوپلاستیک | سریع، هماهنگ با سیستم حاملهای قندی | فوقالعاده سریع به کمک سورفکتانت ذاتی |
| شاخص نمک (Salt Index) | نسبتاً بالا؛ ریسک فیتوتوکسیسیتی در دوز بالا | بسیار پایین و ایمن برای جوانهها و گلبرگ | بسیار پایین؛ کاملاً ملایم برای مریستمهای فعال |
| تحرک ثانویه در آوند آبکش | صفر (مگر در گیاهان تولیدکننده سوربیتول) | متوسط تا بالا (الگوی مشابه کربوهیدرات) | متوسط؛ جذب موضعی آنی با انتقال هدایتشده |
| نقطه نمبینی (POD) | بالا (به سرعت خشک شده و رسوب میکند) | پایین (مرطوب ماندن قطره برای مدت طولانی) | بسیار پایین (خواص عالی هیگروسکوپیک) |
| کاربرد اصلی و بهینه | خاکی و سیستمهای آبیاری قطرهای | محلولپاشی بافتهای بسیار حساس و گلآذین | محلولپاشی فروتست، سبزیجات برگی و درختان |
مدیریت میدانی، اصول محلولپاشی و پیشگیری از سمیت
استفاده از پیچیدهترین و پایدارترین ترکیبات شیمیایی نیز در صورت عدم انطباق با پنجره فیزیولوژیک گیاه به نتایج معکوس میانجامد. مصرف بیرویه و دیرهنگام ترکیبات برگی بور میتواند صدماتی پایدار به برگها، گلها و شاخهها وارد سازد.
تعیین دوز مصرف و زمانبندی طلایی بر اساس چرخه فنولوژیک (فروتست)
حساسترین بازه زمانی برای نیاز به بور، در زمان تفکیک جوانههای زایشی، ظهور لوله گرده و تشکیل میوه (فاز فروتست) رخ میدهد. در مرحله تورم جوانهها قبل از باز شدن کامل گلها در اوایل بهار، بافتهای گلآذین هنوز فاقد آوند چوبی فعال و تعرق قوی برای مکش آب حاوی بور از ریشه هستند.
استفاده از محلول بور اتانولآمین با دوز ۱ تا ۱.۵ لیتر در هزار لیتر آب در فاز تورم جوانه، بور با غلظت کافی را مستقیماً به کلاله و دانه گرده میرساند. غلظت کلسیم و بور درون لوله گرده باید به شکلی دقیق هماهنگ باشد، زیرا بور انتقال کلسیم به راس لوله را هدایت میکند و بدون این همافزایی، لوله گرده پاره شده و لقاح ناکام میماند.
رشد خطی لوله گرده در خامه ────> کاهش ریزش گل و تنظیم لقاح (Fruit-Set)
تکرار محلولپاشی پس از برداشت در باغات خزاندار (اوایل پاییز) یک فاز حیاتی دیگر است. در این برهه، برگها هنوز فعال هستند اما رشد رویشی متوقف شده است؛ محلولپاشی بور اتانولآمین یا کلاتهای پلیال به گیاه اجازه میدهد با انتقال کربوهیدراتی بور را در جوانههای بارده سال بعد ذخیره کند تا در اولین استارت بهاره، سلولها با کمبود موضعی روبرو نشوند.
تعامل اسیدیته (pH)، اختلاط با کلسیم و پایداری فاز در تانک سمپاش
چالش پرتکرار دیگر، تداخل شیمیایی در تانک اختلاط سمپاش است. فرمهای معدنی ساده نمکهای بور در مواجهه با یون کلسیم موجود در کودهای کلسیمی به سرعت رسوب نامحلول دیبورات کلسیم پدید میآورند که موجب گرفتگی نازلها و از دسترس خارج شدن هر دو عنصر میشود.
بور اتانولآمین با دارا بودن خاصیت بافری ضعیف، از این رسوبگذاری فوری جلوگیری میکند. اما باید جانب احتیاط را نگه داشت: مونواتانولآمین به خودی خود pH بازی (بین ۸ تا ۹.۵) در محلول مادر دارد. اگر این ترکیب را به تانکری حاوی سموم حشرهکش حساس به هیدرولیز قلیایی بیفزایید، ممکن است در کمتر از نیم ساعت ساختار حشرهکش از بین برود.
برای رفع این مشکل، روند اختلاط استاندارد به این ترتیب است:
- پر کردن تانک سمپاش تا ۷۰ درصد حجم با آب
- تنظیم اولیه pH با بافرهای اسیدی آلی به محدوده ۵.۵ تا ۶.۵
- افزودن اسید آمینه یا کلات کلسیم
- اضافه کردن فرمولاسیون بور اتانولآمین با همزدن پیوسته
- افزودن آفتکشها در مرحله آخر و کنترل نهایی pH تانک
راهنمای تشخیص بصری مسمومیت در برابر کمبود
مرز بحرانی بین کمبود و مسمومیت بور در بافت برگ در اکثر گونهها کمتر از ۱۰۰ میلیگرم بر کیلوگرم ماده خشک است و مدیریت نوع ترکیب کودی ریسک سوختگی نهایی را کنترل میکند. تفاوتهای علائم فیزیولوژیک این دو پدیده به تفکیک ساختار برگی در دیاگرام زیر ترسیم شده است:
علائم مسمومیت بور (Boron Toxicity): ┌───────────────────────────────────────────────┐ │ - کلروز و زردی از حاشیه برگهای مسن │ │ - نکروزه شدن قهوهای سوخته لبهها (مارجینال) │ │ - تاولهای صمغی روی پوست شاخههای دوساله │ │ - ریزش زودهنگام برگهای انتهایی در تابستان │
علائم کمبود بور (Boron Deficiency): │ - توقف رشد مریستم راسی و بدشکلی برگ جوان │ │ - مرگ جوانه انتهایی (جارویی شدن شاخهها) │ │ - چوبپنبهای شدن بافت گوشتی میوه (Corky Core)│ │ - ریزش شدید گلها قبل از باز شدن کامل │ └───────────────────────────────────────────────┘
در صورت مصرف بیش از حد اسید بوریک معدنی یا نمکهای سدیمی، تجمع بور در نوک و حاشیههای انتهایی برگهای مسن رخ داده و پدیده Margin Necrosis بروز میکند، در حالی که استفاده معقول از فرمولاسیونهای پایدار بور اتانولآمین یا کلاتهای پلیال، پراکندگی متوازنتری از عنصر در لایه مزوفیل ایجاد کرده و از شوک موضعی جلوگیری مینماید.
جمعبندی استراتژیک برای متخصصان تغذیه گیاهی
ارزیابی جامع دادههای بیوشیمیایی و میدانی نشان میدهد که نامگذاری کلات بور بر مبنای EDTA و آمینواسیدها یک افسانه تجاری بدون پشتوانه است؛ برای مدیریت هوشمندانه بور باید تنها بر دو فرمولاسیون واقعی تمرکز کرد:
- کمپلکسهای پلیال (استرهای قندی الکلی): بهترین گزینه برای گیاهانی با شیره پرورده دارای قند الکلی و محلولپاشی در حساسترین فازهای باز شدن گل به دلیل شاخص نمک نزدیک به صفر.
- بور اتانولآمین: فرمولاسیون برتر برای تغذیه برگی عمومی، برنامههای فروتست، سبزیجات فضای باز و گلخانهها؛ به لطف اثر همافزا در حفظ رطوبت قطره، سازگاری عالی با اپیدرم چرب و تحویل بالاترین درصد وزنی عنصر فعال بدون ایجاد خطر سوختگی نمکی.
کودهای معدنی ارزانقیمت (مانند سولوبور و بوراکس) برای اصلاح خاکی در مناطق غیرشور و فاقد سمیت بور مفیدند، اما برای جذب برگی و افزایش قطعی عملکرد، تفاوت فاحش نفوذپذیری ترکیبات ارگانیک بر پایه اتانولآمین قابل چشمپوشی نیست.
سوالات متداول (FAQ)
۱. چرا اصطلاح کلات بور از دیدگاه شیمیایی صحیح نیست؟
بور یک متالوئید فاقد اوربیتال d کاتیونی است و فرمهای غالب آن در محلول، اکسیآنیون بورات یا اسید بوریک خنثی هستند. لیگاندهای مرسوم کلاتاسیون مانند EDTA یا آمینواسیدها به یونهای با بار مثبت (کاتیونها) نیاز دارند؛ بنابراین نمیتوانند با بور کمپلکس حلقوی هماهنگ بسازند. فرم واقعی کلات بور، استرهای قند الکلی (پلیالها) هستند.
۲. مزیت اصلی بور اتانولآمین نسبت به اسید بوریک معمولی چیست؟
بور اتانولآمین رطوبت نسبی بحرانی پایینی دارد، از خشک شدن سریع قطره روی پهنک برگ ممانعت میکند و با عملکردی شبهسورفکتانتی کشش سطحی محلول را کاهش میدهد. این تغییر رفتار باعث میشود ضریب جذب برگی بور اتانولآمین تا سه برابر نسبت به اسید بوریک افزایش یابد.
۳. آیا میتوان بور اتانولآمین را با کودهای کلسیمی مخلوط کرد؟
بله، بر خلاف فرمهای نمکی معدنی که فوراً با کلسیم رسوب بورات کلسیم تشکیل میدهند، ساختار بور اتانولآمین پایداری بهتری در برابر کلسیم دارد. با این حال، به دلیل قلیایی بودن اتانولآمین، باید ابتدا pH تانک را تنظیم و سپس ترکیبها را مرحله به مرحله مخلوط کرد.
۴. بهترین زمان محلولپاشی بور برای افزایش تشکیل میوه (فروتست) چه موقع است؟
بهترین زمان در باغات خزاندار، اوایل بهار هنگام تورم جوانهها قبل از باز شدن کامل گلآذین است. همچنین محلولپاشی ثانویه پس از برداشت محصول در اوایل پاییز (زمانی که برگها سبز و فعال هستند) کمک شایانی به ذخیره بور در جوانههای سال آتی میکند.
۵. چگونه مسمومیت ناشی از کود بور را در باغات تشخیص دهیم؟
مسمومیت بور خود را به شکل کلروز و سوختگی قهوهای در لبهها و نوک برگهای مسنتر، ریزش نابههنگام برگها در تابستان و بعضاً تاولهای صمغی روی شاخههای ترد نشان میدهد. این پدیده حاصل هدایت بور به انتهای مسیر تعرق آپوپلاستی و انباشت بیش از ۱۵۰ میلیگرم در کیلوگرم در بافت برگ است.
پاسخهای کلیدی و فوری (Voice Search & Featured Snippets)
تفاوت اصلی کود بور با بور اتانولآمین چیست؟
بور معدنی پیوندی سست دارد و با تبخیر سریع، به بلور غیرقابل جذب تبدیل میشود. در مقابل، بور اتانولآمین با کاهش تنش سطحی قطره و خاصیت نمبینی قوی، مانع تبلور سریع شده و جذب برگی را تا ۳ برابر افزایش میدهد؛ بنابراین سوختگی برگی ایجاد نکرده و بازدهی حداکثری دارد.
آیا کلات بور با EDTA وجود خارجی دارد؟
خیر؛ از نظر شیمی، بور متالوئیدی بدون اوربیتال d کاتیونی است و توانایی اتصال کوئوردیناسیونی به لیگاندهایی نظیر EDTA یا اسیدهای آمینه را ندارد. محصولات بازار در واقع محلول اسید بوریک هستند و تنها فرم علمی کلات واقعی بور، کمپلکس حلقوی پایدار با الکلهای قندی (پلیالها) است.
زمان طلایی محلولپاشی بور اتانولآمین در باغات چه موقع است؟
زمان طلایی در باغات میوه، هنگام تورم جوانهها در اوایل بهار پیش از باز شدن گلها در برنامه فروتست است تا لقاح و رشد لوله گرده تضمین شود. نوبت دوم پس از برداشت در اوایل پاییز برای ذخیرهسازی بور در جوانههای سال آتی انجام میشود.


