1.کنترل سیاه شدن مغز گردو با کودهای مناسب
اکتبر 24, 2026
1. نقش عصاره جلبک دریایی در کاهش تنش خشکی و شوری گیاه
نوامبر 1, 2026
فهرست مطالب
- 1 مصرف کود کلسیم و راز شکست آن در مهار پوسیدگی گلگاه
- 1.1 مکانیک هیدرولیک گیاه: چرا مصرفکود کلسیم به گلگاه میوه نمیرسد؟
- 1.2 نبرد کاتیونها در ریزوسفر؛ وقتی کلسیم پشت درهای ریشه حذف میشود
- 1.3 ریزاقلیم، نوسان VPD و تخریب شبانه پمپ فشار ریشهای
- 1.4 آسیبشناسی بیوشیمیایی گلگاه؛ لحظه تخریب ساختار دیواره سلولی
- 1.5 پروتکلهای راهبردی جایگزین برای تأمین واقعی کلسیم در بافت هدف
- 1.5.1 اصلاح و موازنه نسبتهای کاتیونی در بستر ریشه
- 1.5.2 استراتژی دقیق محلولپاشی: تمرکز بر میوه چه زمانی جواب میدهد؟
- 1.5.3 مدیریت نوسانات آبیاری و ریزاقلیم بر مبنای پتانسیل ماتریک خاک
- 1.5.4 استانداردها، دوزهای مؤثر و زمانبندی طلایی مصرف کلسیم
- 1.5.5 سیگنالهای اعتماد؛ درک واقعیت فیزیولوژی در میدان عمل
- 1.6 جمعبندی نهایی
- 1.7 بخش سوالات متداول (FAQ Block)
- 1.8 سوالات متداول
مصرف کود کلسیم و راز شکست آن در مهار پوسیدگی گلگاه
مصرف کود کلسیم تنها زمانی پوسیدگی گلگاه را درمان میکند که مسیر جریان تودهای آب به سمت بافت میوه بدون اختلال کار کند؛ در غیر این صورت، افزودن نمکهای کلسیمی به خاک هیچ تأثیری در رفع عارضه نخواهد داشت. واقعیت این است که پوسیدگی گلگاه یک بیماری ناشی از «کمبود مطلق کلسیم در خاک» نیست، بلکه یک اختلال فیزیولوژیک مرتبط با «انتقال و توزیع کلسیم درون اندامهای گیاهی» است. هر زمان که فشار تعرق برگها بر پتانسیل مکش میوه غلبه کند یا غلظت بالای عناصری مثل پتاسیم و آمونیوم در خاک مانع جذب یونی شوند، تزریق هزاران لیتر کود کلسیمی نیز بافت انتهای میوه را از مرگ سلولی نجات نمیدهد.
مکانیک هیدرولیک گیاه: چرا مصرفکود کلسیم به گلگاه میوه نمیرسد؟
جریان شیره خام در گیاه شبیه به یک شبکه آبرسانی شهری با صدها انشعاب نامتقارن عمل میکند. در این شبکه، کلسیم مسافر انحصاری واگنهای آب در بافت چوبی (Xylem) است. اگر جریان آبی وجود نداشته باشد یا مسیر آن به سمت مقصد دیگری منحرف شود، کلسیم در مبدأ جا میماند.
بسیاری از کشاورزان تصور میکنند با محلولپاشی یا کوددهی خاک، کلسیم مانند قندها از طریق آوند آبکش به هر کجای گیاه که نیاز باشد فرستاده میشود. این بزرگترین خطای بیولوژیکی در تغذیه باغات و صیفیجات است.
| جریان تعرق و انتقال انتخابی کلسیم |
│ تعرق شدید روزانه (خروج بخار آب از روزنهها)
[ شاخوبرگها ] ◄─── ۹۰٪ تا ۹۵٪ جریان هیدرولیکی آوند چوبی حاوی کلسیم
[ ساقه اصلی ]
[ ریشه ] ◄── جذب جریان تودهای کلسیم (Mass Flow)
└───► [ میوه جوان ] ◄─── فقط ۵٪ جریان (تعرق ناچیز به دلیل پوست کوتیکولی)
نتیجه: قحطی موضعی کلسیم در گلگاه!
تله تعرق؛ برگها چگونه کلسیم میوه را میربایند؟
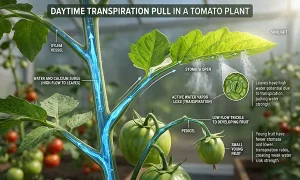
نکته جالب اینجاست که موتور محرکه اصلی انتقال کلسیم از ریشه به اندامهای هوایی، پدیدهای به نام کشش تعرقی (Transpiration Pull) است. روزنههای موجود در سطح برگها باز میشوند، آب تبخیر میشود و یک پتانسیل آب به شدت منفی ایجاد میکند که مانند یک پمپ مکنده غولپیکر، آب و یونهای همراه آن را از طریق آوند چوبی به بالا میکشد. حالا ببینید سطح برگ یک بوته گوجهفرنگی را در مقایسه با پوست یک میوه سبز و جوان: سطح برگ پوشیده از هزاران روزنه فعال با تبادل مداوم گاز و آب است، در حالی که میوه پوستی ضخیم، مومی و نفوذناپذیر با تعداد بسیار اندکی روزنه غیرفعال دارد.
طبیعتاً چه اتفاقی میافتد؟ بیش از ۹۰ درصد شیره خام حاوی کلسیم، مستقیماً به سمت برگها منحرف میشود. برگها به معنای واقعی کلمه، کلسیم را از دهان میوه میربایند! میوه به دلیل تعرق فوقالعاده اندک، توانایی ایجاد شیب مکش برای کشیدن یونهای هیدراته کلسیم به سمت خود را ندارد. در روزهای گرم و خشک، حتی اگر خاک از کود کلسیم اشباع باشد، سرعت خروج آب از برگها سرسامآور میشود و سهم میوه از کلسیم باز هم کاهش مییابد؛ به همین دلیل است که مصرف کود کلسیم در روزهایی که گیاه زیر تنش تبخیر و تعرق شدید قرار دارد، کمترین بازده ممکن را ثبت میکند.
بنبست آوند آبکش؛ توهم جابهجایی کلسیم از برگ به میوه
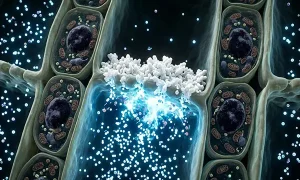
آیا گیاه نمیتواند کلسیم مازادی را که به برگها رفته، جمعآوری کرده و از طریق آوند آبکش (Phloem) به سمت میوهها ارسال کند؟ پاسخ قاطع فیزیولوژی به این سوال «خیر» است. کلسیم برخلاف عناصر متحرکی مانند نیتروژن، پتاسیم و فسفر، کاملاً غیرمتحرک (Immobile) است.
سلولهای زنده آوند آبکش حاوی مقادیر بالایی از یونهای فسفات هستند؛ اگر غلظت کلسیم آزاد
Ca^(2+)) در سیتوپلاسم یا لوله غربالی آبکش از مرز نانومولار فراتر برود، کلسیم فوراً با فسفات رسوب داده و نمک نامحلول فسفات کلسیم تشکیل میدهد. این رسوبگذاری به سرعت منافذ صفحه غربالی را مسدود کرده و حیات سلولی را مختل میسازد. از طرف دیگر، غلظت بالای کلسیم در سیتوپلاسم با ارسال سیگنالهای کاذب، فرآیندهای متابولیک گیاه را دچار شوک میکند.
گیاه به شکل هوشمندانهای غلظت کلسیم درون سیتوزول و آوند آبکش را در حد صفر نگه میدارد و تمام مازاد آن را در واکوئلهای سلول برگ یا به شکل بلورهای اگزالات کلسیم رسوب میدهد و تثبیت میکند. وقتی کلسیم وارد برگ شد، وارد یک جاده یکطرفه شده است؛ این عنصر هرگز بلیت بازگشت به سمت میوه دریافت نخواهد کرد. بنابراین تفکر تزریق کودی برای پر کردن برگها به امید انتقال به گلگاه، نادیده گرفتن بدیهیات فیزیولوژی گیاهی است.
نبرد کاتیونها در ریزوسفر؛ وقتی کلسیم پشت درهای ریشه حذف میشود
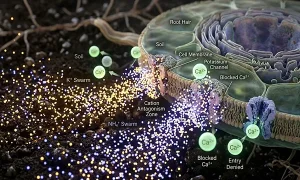
جذب آب و عناصر غذایی در سطح ریشه، یک فرآیند آرام و خالی از منازعه نیست. در محیط ریزوسفر (اطراف ریشه)، یونهای با بار مثبت بر سر ورود به کانالهای پروتئینی غشای سلولی رقابت شدیدی دارند. تحقیقات بافتشناسی نشان میدهد که غلظت کلسیم در بافت دیستال میوههای مبتلا به پوسیدگی گلگاه، معمولاً کمتر از ۰.۰۸ درصد وزن خشک بافت است؛ در حالی که حداقل غلظت بحرانی برای حفظ یکپارچگی سلولی ۰.۱۲ درصد است. این کسری بحرانی، عمدتاً در خاک و درست پیش از ورود یون به استوانه آوندی رخ میدهد.
اثر مخرب آمونیوم و پتاسیم بر کانالهای کلسیمی غشا
اگر از کارشناسانی باشید که برنامه کودی را صرفاً با برچسب کیسهها تنظیم میکنند، احتمالاً فاجعه آنتاگونیسم کاتیونی را تجربه کردهاید. کلسیم
Ca^(2+)
) یک کاتیون دوظرفیتی سنگین با شعاع هیدراته بسیار بزرگ است. ورود این یون به سلولهای ریشه نیازمند عبور از مسیرهای غیرفعال آپوپلاست و کانالهای کاتیونی غیراختصاصی است.
حالا تصور کنید مقادیر زیادی کودهای پتاسیمی
K^+
) یا کودهای نیتروژنه با پایه آمونیومی
NH_4^+
) در خاک مصرف شده باشد. این یونهای تکظرفیتی با شعاع هیدراته کوچکتر و تحرک بهمراتب بالاتر، کانالهای اتصالی ریشه را اشباع میکنند و مانع ورود یون حجیم و دافع کلسیم میشوند.
نکته جالب اینجاست که یون منیزیم
Mg^(2+)
) نیز با وجود دوظرفیتی بودن، به شدت کلسیم را مهار میکند. زمان استفاده مفرط از کودهای منیزیمی، بدون در نظر گرفتن سطح خاکی کلسیم، پوسیدگی گلگاه با سرعتی غیرمنتظره طغیان خواهد کرد. نسبت کاتیونی در فاز مایع خاک باید در تعادل دینامیک باشد؛ اگر نسبت میلیاکیوالان پتاسیم به کلسیم از نسبت استاندارد
K:Ca>0.5
) فراتر برود، ریشه گیاه عملاً در برابر جذب کلسیم نابینا میشود. در واقع شما کود کلسیم خریدهاید، اما با دست خودتان کانالهای دریافت آن را با پتاسیم و آمونیوم اضافه قفل کردهاید.
| کاتیون رقیب | فرم یونی | مکانیسم مهار کلسیم | آستانه خطرناک نسبت یونی |
|---|---|---|---|
| پتاسیم | K^+ | اشغال سریع کانالهای غیراختصاصی به دلیل شعاع هیدراته کمتر | نسبت مولی K/Ca بالاتر از ۱.۲ در محلول ریشه |
| آمونیوم | NH_4^+ | اسیدیکردن موضعی و کاهش جذب جریان همرفتی کلسیم | سهم آمونیوم بیش از ۱۵٪ از کل نیتروژن مصرفی |
| منیزیم | Mg^(2+) | چسبندگی مشابه به جایگاههای بار و پسزدن کاتیون دوظرفیتی کلسیم | نسبت مولی Mg/Ca بالاتر از ۰.۸ در شیره خاک |
| سدیم | Na^+ | جابهجایی و تخریب کلسیم متصل به پکتات دیواره در شرایط شوری | مقدار نسبت جذب سدیم (SAR) بیش از ۳ |
هدایت الکتریکی (EC) بالا و خفگی اسمزی در جذب جریان تودهای
آیا تابهحال دقت کردهاید که چرا در خاکهای شور یا سیستمهای هیدروپونیک با کوددهی غلیظ، پوسیدگی گلگاه حتی با تزریق بالاترین دوزهای کلسیم ریشهکن نمیشود؟ مکانیسم جذب کلسیم، به پدیدهای به نام جریان تودهای (Mass Flow) متکی است. به زبان مهندسی: کلسیم باید روی موج ورود آب به داخل ریشه شنا کند.
هنگامی که شوری خاک یا هدایت الکتریکی محلول غذایی (EC) بالا میرود، پتانسیل اسمزی محلول خاک منفیتر میشود. در این وضعیت، گیاه برای کشیدن آب به داخل ریشه باید نیروی مکش فوقالعاده بالاتری صرف کند. این تنش اسمزی، حتی پیش از اینکه پژمردگی مشهود در برگها ظاهر شود، حجم جریان تودهای آب به داخل بافت چوبی را به شدت کاهش میدهد. وقتی ورود آب کند شد، کلسیم اولین عنصری است که پشت دربهای نفوذناپذیر ریشه جا میماند. کوددهی کلسیم به همراه مقادیر بالایی از نمکها، صرفاً EC خاک را بالاتر برده و گیاه را در چرخه مرگبار شوری و قحطی اسمزی گرفتار میکند.
ریزاقلیم، نوسان VPD و تخریب شبانه پمپ فشار ریشهای
اجازه دهید دیواری که همیشه بین تغذیه و محیط کشیده شده را بشکنیم: چرا عارضه گلگاه سیاه در مزارع مجاور کویر یا گلخانههای فاقد پد خنککننده در اواسط تابستان ویرانکنندهتر است، حتی اگر کوددهی کاملاً طبق کاتالوگهای معتبر اجرا شده باشد؟ پاسخ در فیزیک اتمسفر و متغیری به نام کسری فشار بخار (Vapour Pressure Deficit یا VPD) نهفته است.
| پدیده تعرق روزانه در برابر فشار شبانه |
روز (VPD بالا، هوا گرم و خشک):
[جریان پرفشار چوبی] ═════════════════════► به سمت برگها (تبخیر سریع)
└──► میوه تشنه میماند!
شب (رطوبت بالا، روزنهها بسته):
[فشار ریشهای پمپ میشود] ──────────────────► به سمت میوه
(کلسیم به گلگاه میرسد)
*اگر شب رطوبت صفر باشد یا ریشه شور باشد، فشار ریشهای شکل نمیگیرد = پوسیدگی قطعی.*
رطوبت نسبی هوا و خطای محاسباتی در بازماندن روزنهها
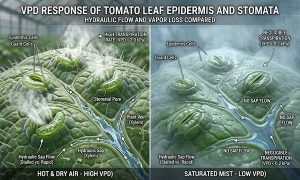
کسری فشار بخار (VPD) در واقع تفاضل میان میزان رطوبت موجود در هوا و حداکثر رطوبتی است که هوا میتواند در آن دما نگه دارد. وقتی VPD بسیار بالاست (هوای داغ و خشک)، جو مانند یک اسفنج غولپیکر رطوبت را از برگها میمکد. در این پیک زمانی، تقاضای تبخیر به اوج میرسد و جریان تعرقی، هر آنچه کلسیم در ریشه وجود دارد را با سرعت بالا به سمت برگهای در حال تبخیر پمپاژ میکند تا برگ نسوزد؛ میوه در این سناریو به صورت کامل دور زده میشود.
اما نکته معکوس و شگفتآور اینجاست: ثابت شده است که شرایط VPD کمتر از ۰.۲ کیلوپاسکال (رطوبت اشباع مداوم) نیز پوسیدگی گلگاه را به همان اندازه تشدید میکند، زیرا در غیاب تعرق، جریان هیدرولیکی آوند چوبی برای جابهجایی کلسیم متوقف میشود. وقتی تعرقی نباشد، جریانی در آوند چوبی شکل نمیگیرد و بدون جریان، کلسیمِ بدون تحرک، به هیچ بخشی از گیاه از جمله میوه نخواهد رسید. پس تعرق خیلی زیاد فاجعه است و تعرق صفر هم فاجعهای دیگر!
فشار ریشهای شبانه؛ تنها فرصت طلایی فرستادن کلسیم به مخزن میوه
پس میوه چه زمانی فرصت دارد سهم کلسیم خود را از ریشه مطالبه کند؟ پاسخ فیزیولوژیک این معما در تاریکی شب نهفته است. شبهنگام، روزنههای برگ بسته میشوند و کشش تعرقی روزانه خاموش میگردد. در این شرایط، اگر رطوبت محیط بالا باشد و خاک نیز سیراب باشد، ریشهها به کمک پمپهای یونی فعال، یونها را به درون استوانه مرکزی میریزند؛ آب به دنبال یونها هجوم میآورد و فشاری مثبت به نام «فشار ریشهای» (Root Pressure) پدید میآید.
این فشار هیدرولیکی مثبت، نیازی به تعرق برگ ندارد. شیره خام آوندی در طول شب به آرامی به تمام بافتها، بهویژه اندامهای دارای تعرق ضعیف مثل میوههای جوان، تزریق میشود. پدیده تعریق (Guttation) که صبح زود به صورت قطرات شبنممانند در لبه برگها میبینید، نشانه کارکرد بینقص همین فشار ریشهای است.
حالا تصور کنید گلخانهدار شبها با تهویه سنگین، رطوبت را صفر کند یا به علت ترس از بیماری قارچی، خاک در طول شب تشنه بماند؛ یا به دلیل شوری بالا، ریشه توان ساخت فشار اسمزی مثبت را از دست بدهد. در چنین شرایطی تنها فرصت انتقال کلسیم به بافت میوه از دست میرود. در طول روز برگها اجازه رسیدن کلسیم را نمیدهند و در طول شب نیز عامل انتقال غیرفعال را خاموش کردهاید؛ نتیجه نهایی مشخص است: نکروز سیاهرنگ گلگاه!
آسیبشناسی بیوشیمیایی گلگاه؛ لحظه تخریب ساختار دیواره سلولی
بیایید لنز میکروسکوپ را به انتهاییترین نقطه یک میوه جوان گوجهفرنگی ببریم، جایی که سلولها با سرعت سرسامآوری در حال تقسیم و بزرگشدن هستند. در این مرحله، هرگونه کمبود لحظهای در تأمین کلسیم، پاسخی مکانیکی و ویرانگر به دنبال دارد.
[ساختار سالم با کلسیم کافی] [ساختار بدون کلسیم (پوسیدگی)]
│ زنجیره پکتین │ │ زنجیره پکتین │
│ -COO⁻ -COO⁻ -COO⁻ │ │ -COO⁻ -COO⁻ -COO⁻ │
│ [ یون Ca²⁺ ] │ │ (پیوند متلاشیشده) │
│ -COO⁻ -COO⁻ -COO⁻ │ │ -COO⁻ -COO⁻ -COO⁻ │
│ زنجیره پکتین │ │ زنجیره پکتین │
دیواره سلولی صلب و مستحکم فروپاشی دیواره، نشت سلولی
و ایجاد بافت سیاه و اسفنجی
پیوند متقاطع پکتات کلسیم و شوک توسعه سریع سلول
دیواره اولیه سلولهای گیاهی و تیغه میانی (Middle Lamella) برای چسبیدن به یکدیگر و مقاومت در برابر فشار آماس (Turgor pressure) به مادهای به نام «پکتات کلسیم» نیاز دارند. یون کلسیم مثل یک بست فلزی عمل میکند؛ این یون دوظرفیتی میان گروههای کربوکسیل منفی اسید پکتیک پل میزند و ساختار لرزانکمانند ژل پکتین را به سپری مستحکم و نفوذناپذیر تبدیل میکند.
در فاز رشد انفجاری میوه، وقتی سلولها آبگیری میکنند تا چندین برابر اندازه اولیه خود متسع شوند، دیواره سلولی باید به سرعت با پکتات کلسیم تثبیت شود. اگر در این پنجره زمانی محدود یون کلسیم حاضر نباشد، دیوارههای نوبنیاد ضعیف و شکننده باقی میمانند. فشار درونی تورژسانس، غشاهای مهارنشده را پاره میکند. این اتفاق دقیقاً در دورترین بافت از لولههای آوندی میوه، یعنی انتهای گلگاه، رخ میدهد. با تخریب دیواره، مایعات داخل سلولی به فضاهای بینسلولی نشت کرده و اولین لکههای آبسوخته پدیدار میشوند.
طوفان رادیکالهای آزاد (ROS) و نکروز غیرقابل بازگشت
اما داستان تخریب به ضعف فیزیکی دیواره ختم نمیشود. کلسیم وظیفه دیگری دارد که حفظ پایداری غشای فسفولیپیدی و تنظیم فعالیت آنزیمهای آنتیاکسیدانی است. به محض افت کلسیم موضعی، غشای سلول قطبیت خود را از دست میدهد و پمپهای فسفولیپاز فعال میشوند.
این امر منجر به یک آبشار مخرب از انباشت گونههای فعال اکسیژن (ROS) مثل پراکسید هیدروژن و رادیکالهای هیدروکسیل میگردد. رادیکالهای آزاد به چربیهای غشا حمله میکنند، محتویات اسیدی سیتوپلاسم با واکوئل درهم میآمیزد، ترکیبات فنولی اکسید میشوند و بافت میمیرد. رنگ سیاه گلگاه در واقع خاکستر ناشی از سوختن لیپیدها و پروتئینهای ساختاری سلول زیر تازیانه اکسیداسیون است؛ در این فاز، بافت کاملاً مرده است و مصرف کود کلسیم مانند پاشیدن آب روی ساختمانی است که از ساعاتی پیش کاملاً در آتش سوخته است.
پروتکلهای راهبردی جایگزین برای تأمین واقعی کلسیم در بافت هدف
اگر پرتاب کورکورانه کود کلسیم به خاک فایدهای ندارد، چاره مهندسی چیست؟ درمان این اختلال، نیازمند تغییر در طراحی استراتژی تغذیه و محیط است. این یک بازی چندمتغیره میان ریشه، برگ، رطوبت و میوه است.
اصلاح و موازنه نسبتهای کاتیونی در بستر ریشه
پیش از هر تصمیمی برای افزودن کلسیم به خاک یا سیستم آبیاری، غلظت کاتیونهای رقیب در شیره خاک باید تحلیل و تعدیل شود:
- ✔
کنترل و مهار آمونیوم: در دورههای گرم سال یا در فاز گلدهی تا فندقی شدن میوه، مصرف فرم آمونیومی نیتروژن
NH_4^+
) باید به زیر ۱۰ درصد کل نیتروژن دریافتی تقلیل یابد و بخش اصلی نیتروژن از فرم نیترات
NO_3^-
) تأمین شود؛ زیرا نیترات برخلاف آمونیوم، یک آنیون است و با کشش سینرژیک، جذب کلسیم را در غشای ریشه تحریک میکند. - ✔
برقراری تعادل نسبت
K:Ca
: نسبت بهینه و استاندارد میلیاکیوالان پتاسیم به کلسیم در محلول غذایی برای سبزیجات ثمری مانند گوجهفرنگی و فلفل باید بین
1:1
تا حداکثر
1:1.5
در پیک باردهی حفظ شود. بالا بردن بیمحابای پتاسیم برای رنگگیری میوه در اوایل تشکیل میوه، حکم امضای سند قطعی پوسیدگی گلگاه است. - ✔
پایش نسبت
Mg:Ca
: مجموع بار منیزیم نباید از یکسوم کلسیم آزاد خاک بیشتر شود؛ در صورت مشاهده همبستگی بالای منیزیم در آنالیز عصاره اشباع، مصرف کودهای منیزیمی باید موقتاً تعلیق گردد.
استراتژی دقیق محلولپاشی: تمرکز بر میوه چه زمانی جواب میدهد؟
چندین دهه است که محلولپاشی کلسیم تجویز میشود، اما کشاورزان اغلب میگویند باز هم نتیجه ندیدهاند! دلیل این شکست، روش محلولپاشی است. محلولپاشی کلسیم روی برگها، پوسیدگی گلگاه را درمان نمیکند، زیرا کلسیم نشسته روی برگ هرگز به میوه ترابری نمیشود؛ محلولپاشی برگی کلسیم تنها در شرایطی مانع پوسیدگی گلگاه میشود که قطرات مستقیماً سطح بافت میوههای بسیار جوان (اندازه یکچهارم تا یکدوم نهایی) را پوشش دهند.
زمانی که میوه هنوز بافت کوتیکولی ضخیم پیدا نکرده است، سلولهای بیرونی از طریق شکافهای ریز سلولی و منافذ جوان، قابلیت جذب اندک اما موضعی یون کلسیم را دارند. برای افزایش راندمان این جذب مستقیم:
- •
از فرمولاسیونهای کلسیم با چنگالکنندههای آلی طبیعی مانند کمپلکسهای اسید آمینهای، قند-الکلها (مانند فرمهای کلسیم همراه با مانیتول و سوربیتول) یا کلرید کلسیم با خلوص بالا استفاده شود. - •
محلولپاشی باید حتماً در هوای خنک صبحگاهی، با زاویه نازل متمرکز بر خوشههای میوه و به همراه مویانهای مرطوبکننده غیریونی (Surfactants) برای کاهش کشش سطحی قطره اجرا شود.
مدیریت نوسانات آبیاری و ریزاقلیم بر مبنای پتانسیل ماتریک خاک
نامنظم بودن دورهای آبیاری بزرگترین ماشهچکان پوسیدگی گلگاه است. زمانی که خاک خشک میشود، مقاومت مکانیکی ذرات به سمت کشش شدید آب میرود و نفوذ ریشه افت میکند؛ سپس با آبیاری غرقابی ناگهانی، خاک دچار خفگی لحظهای ناشی از کمبود اکسیژن میشود که هر دو حالت انتقال کلسیم را فلج میکنند.
- ▲
پتانسیل ماتریک آب در محدوده ریشه باید به کمک سنسورهای رطوبتسنج (Tensiometer) در رنج بحرانی بین -۲۰ تا -۳۰ کیلوپاسکال ثابت بماند. هیچ نوسانی بین خشکی گزنده و ماندابی نباید رخ دهد. - ▲
در گلخانهها باید پارامتر VPD در بازه استاندارد ۰.۸ تا ۱.۲ کیلوپاسکال هدایت شود. اگر در روزهای داغ VPD به بالای ۱.۸ رسید، سیستم مهپاش (Fogger) و سایهبانها فوراً فعال شوند تا با کاهش بار تعرق از روی برگها، به میوهها امکان نفس کشیدن و حفظ فشار هیدرولیک درون آوندی داده شود.
استانداردها، دوزهای مؤثر و زمانبندی طلایی مصرف کلسیم
استفاده از منابع کلسیمی باید بر مبنای سرعت رهایش، شوریزایی و همبستگی بستر خاک انتخاب گردد:
[ فاز رشدی گیاه ]
│
├─► ۱. استقرار و رشد رویشی:
│ تنظیم بستر با کلسیم خاکمصرف (سولفات کلسیم / نیترات کلسیم)
│
├─► ۲. گلدهی و تشکیل میوه اولیه (مرحله طلایی):
│ کنترل VPD + کاهش آمونیوم + محلولپاشی مستقیم میوههای فندقی
│
└─► ۳. درشتشدن میوه تا رسیدگی:
پایش نسبت K:Ca + حفظ منظم رطوبت خاک بدون نوسان EC
- ◆
نیترات کلسیم
Ca(NO_3 )_2
): با دارا بودن حدود ۱۹ درصد کلسیم و ۱۵.۵ درصد نیتروژن نیتراتی، استانداردترین ترکیب در کشتهای خاکی و هیدروپونیک است؛ به شرطی که هدایت الکتریکی آب مانع نباشد. دوز استاندارد خاکی در گلخانه: ۱ تا ۲ گرم در هر لیتر آب آبیاری در دورههای حساس. - ◆
سولفات کلسیم (ژیپس/گچ کشاورزی): ایدهآلترین منبع کلسیم برای خاکهای سدیمی و مناطقی که افزودن نیتروژن نیتراتی در اواخر فصل مقدور نیست. بدون بالا بردن شدید EC، کلسیم را به آرامی در فاز مایع خاک آزاد میکند. - ◆
کلرید کلسیم
CaCl_2
): یکی از ارزانترین و سریعالجذبترین گزینهها برای محلولپاشی موضعی روی خود میوهها، با غلظت استاندارد ۲ تا حداکثر ۴ گرم در هزار (۰.۲ تا ۰.۴ درصد). مصرف بیش از این دوز روی شاخوبرگ، ریسک گیاهسوزی حاد ناشی از کلر را بالا میبرد.
سیگنالهای اعتماد؛ درک واقعیت فیزیولوژی در میدان عمل
هیچ معجزهای درون شیشههای گرانقیمت کلاتهای فانتزی کلسیم نهفته نیست که بتواند قوانین فیزیک جریان سیال در گیاه را دور بزند. هر زمان بروشوری ادعا کرد کود کلسیمی با قابلیت حرکت در هر دو آوند چوبی و آبکش بدون نیاز به تعرق ساخته است، مطمئن باشید مبانی آناتومی گیاهی را زیر پا گذاشته است. حل پایدار عارضه پوسیدگی گلگاه، نه در افزایش خریدهای کودی، بلکه در تنظیم جریان تبادل آب، تنظیم بالانس یونی خاک و پایش مداوم استرسهای اقلیمی تعریف میشود.
جمعبندی نهایی
پوسیدگی گلگاه نماد روشن بیماریهای اختلال در مدیریت و توزیع است، نه قحطی در دسترس بودن کود. مصرف بیرویه و شتابزده کود کلسیم در زمان پدیدار شدن لکههای سیاه در میوه، به دلیل بنبست آوند آبکش، آنتاگونیسم کاتیونی و آسیب برگشتناپذیر پکتات دیواره سلولی، تقریباً بیاثر است. راهکار واقعی و ریشهای در کنترل دقیق نسبتهای یونی
K/Ca
و
Mg/Ca
) در بستر، حفظ رطوبت یکنواخت بدون نوسان اسمزی، و مدیریت هوشمندانه تعرق در روز و تقویت فشار ریشهای در طول شب خلاصه میشود.
بخش سوالات متداول (FAQ Block)
به این دلیل که نیترات کلسیم تزریقشده به خاک منحصراً از طریق آوند چوبی و همراه با کشش تعرقی حرکت میکند؛ در شرایط هوای گرم یا خشکی هوا، ۹۵ درصد این کلسیم مستقیماً وارد برگها با تعرق بالا شده و سهم ناچیزی به میوه میرسد. علاوه بر این، نوسان آب یا بالا رفتن شوری خاک راندمان جذب را به صفر میرساند.
خیر، محلولپاشی روی برگها هیچ تأثیری در کاهش پوسیدگی گلگاه ندارد؛ زیرا کلسیم در آوند آبکش گیاه غیرمتحرک است و به میوه منتقل نمیشود. محلولپاشی تنها زمانی اثرگذار خواهد بود که ذرات محلول مستقیماً و به صورت یکنواخت روی پوست میوههای جوان در نخستین مراحل رشد فندقی پاشیده شوند.
در فاز تشکیل میوه، نسبت میلیاکیوالان پتاسیم به کلسیم در شیره خاک باید حداکثر بین ۱ تا ۱.۲ حفظ شود. هرگونه افراط در مصرف کودهای پتاسیمی یا نیتروژن آمونیومی سبب رقابت یونی شدید و بلوکه شدن کانالهای جذب کلسیم در غشای ریشه میگردد.
در طول شب که روزنههای برگ بسته هستند و کشش تعرقی وجود ندارد، فشار ریشهای پدیدار شده و آب را به سمت اندامهای با تعرق اندک مانند میوهها پمپ میکند. این فشار هیدرولیکی شبانه، تنها فرصت طلایی بیولوژیکی برای رسیدن کلسیم به انتهای میوه است؛ اگر شبها تهویه بیش از حد یا خاک خشک باشد، این فرصت از دست میرود.
پوسیدگی گلگاه دقیقاً در نقطه اتصال گل به میوه (انتهای بافت دیستال) و به شکل لکهای فرورفته، چرمی و تیره پدید میآید؛ در حالی که آفتابسوختگی در سطوح جانبی رو به نور مستقیم آفتاب تشکیل شده و بافتی سفیدرنگ، کاغذی و بدون فرورفتگی عمیق اولیه بر جای میگذارد.
سوالات متداول
چرا با وجود مصرف کود کلسیم، پوسیدگی گلگاه همچنان رخ میدهد؟
کلسیم فقط از طریق آوند چوبی و جریان آب ناشی از تعرق حرکت میکند. بیش از ۹۰ درصد کلسیم جذبشده مستقیماً به برگها میرود و به دلیل تعرق ناچیز میوه و عدم انتقال کلسیم از آوند آبکش، بافت گلگاه دچار کمبود موضعی شده و مصرف خاکی کود نیز بیاثر میماند.
آیا محلولپاشی کلسیم روی برگها مانع پوسیدگی گلگاه میشود؟
خیر؛ کلسیم در گیاه کاملاً غیرمتحرک بوده و از بافت برگ به سمت میوهها جابهجا نمیشود. محلولپاشی کلسیم تنها در صورتی مؤثر خواهد بود که قطرات محلول مستقیماً و به صورت یکنواخت روی پوست میوههای بسیار جوان و تازه تشکیلشده با بافت کوتیکولی نازک اسپری شوند.
نقش فشار ریشهای شبانه در جلوگیری از پوسیدگی گلگاه چیست؟
شبهنگام با بسته شدن روزنههای برگ، پمپ فشار ریشهای فعال شده و شیره حاوی کلسیم را بدون رقابت تعرقی برگها، مستقیماً به بافت میوههای جوان هدایت میکند. تهویه شدید، خشکی بستر یا شوری خاک در طول شب، این مکانیسم حیاتی را متوقف و عارضه را تشدید مینماید.