1. مصرف کود کلسیم و راز شکست آن در مهار پوسیدگی گلگاه
اکتبر 31, 2026
نقش عصاره جلبک دریایی در کاهش تنش خشکی و شوری گیاه
عصاره جلبک دریایی از طریق تحریک سریع سنتز آنتیاکسیدانهای آنزیمی، تثبیت فشار تورژسانس با اسمولیتهای سازگار و حفظ نسبت بحرانی یون پتاسیم به سدیم، ساختار فتوسنتزی گیاه را در برابر بیآبی و سمیت نمک ایمن میکند. این بیواستیمولانت فراتر از تامین عناصر ماکرو، سامانههای پیامرسان درونی گیاه را برای مهار پراکسیداسیون لیپیدی و تنظیم روزنهای فعال میسازد. در این تحلیل جامع فیزیولوژیک، مسیرهای ملکولی دقیق این ترکیبات در تقابل با تنشهای غیرزیستی رصد شده و راهکارهای اجرایی بهرهبرداری از آنها بررسی میشود.
وقتی گیاه با خاک خشک یا لایههای انباشته از املاح سدیم و کلر مواجه میشود، نخستین اتفاق، سقوط پتانسیل آب خاک و قطع جریان مکش هیدرولیکی است. نقش عصاره جلبک دریایی در کاهش تنش خشکی و شوری گیاه دقیقاً در همین نقطه بحرانی آشکار میشود؛ جایی که ریشهها از ارسال آب ناتوان میمانند و گیاه میان مرگ بر اثر گرسنگی کربنی یا مرگ بر اثر پژمردگی و مسمومیت یونی گرفتار میگردد. عصاره جلبکهای دریایی حاوی شبکه پیچیدهای از محرکهای زیستی هستند که رونویسی ژنهای تنظیمی پمپهای یونی غشا و آنزیمهای پاککننده رادیکال آزاد را به محض وقوع شوک اسمزی القا میکنند. این پاسخ ملکولی، تلفات عملکرد ناشی از شرایط تنشزا را به حداقل میرساند.
ماهیت بیوشیمیایی عصاره جلبک دریایی؛ تحلیلی فراتر از یک کود کلاته
برخی هنوز عصاره جلبک دریایی را یک فرمول کودی ساده حاوی چند عنصر ریزمغذی و مقداری پتاسیم تلقی میکنند. این تصور از بنیان اشتباه است. خاکستر خشک جلبکهای قهوهای عمدتاً متشکل از یک ماتریس آلی پیچیده است که در آن فیتوهورمونها، بتائینها، پلیساکاریدهای ساختاری، قند-الکلها و الیگوساکاریدها در یک کمپلکس همافزا با یکدیگر پیوند خوردهاند.
جلبکهای قهوهای، به ویژه Ascophyllum nodosum و Ecklonia maxima، در زیستگاههای طبیعی خود یعنی خطوط جزر و مدی اقیانوسها زیست میکنند. این جانداران روزانه دو بار در معرض نوسانات شدید شوری آب دریا، خشکی مطلق بر اثر وزش باد و نور مستقیم خورشید، و سرمای انجماد قرار دارند. فرگشت این ارگانیسمها موجب سنتز ترکیبات محافظ زیستی شده که خواص آنتیاکسیدانی و تعدیلکننده اسمزی دارند. وقتی این مواد با روشهای بیوشیمیایی استاندارد تخلیص و روی بافتهای آوندی گیاهان خشکیزی اعمال میشوند، همان آبشار سیگنالینگ بقا را در سلولهای مزوفیل برگ و تار کشنده ریشه بیدار میکنند.
۲. تنظیم مسیرهای اسمزی (افزایش پرولین و مانیتول) ← پایداری تورژسانس
۳. تنظیم ترابردکنندههای یونی (تعدیل SOS و HKT1) ← دفع Na+ و حفظ K+
• فیتوهورمونها و سیگنالدهندههای ثانویه در بافت جلبکهای قهوهای
عصاره جلبک حاوی مقادیر مشخصی از اکسینها، سیتوکینینها، جیبرلینها و در ابعادی متفاوت، براسینواستروئیدها است. ماهیت عملکردی این فیتوهورمونها صرفاً تحریک مستقیم رشد ساقه و برگ نیست، بلکه القای پیامرسانی بینسلولی است. حضور سیتوکینینهای فعال نظیر زآتین ریبوزید و ایزوپنتنیل آدنین در ساختار عصاره، مانع از تحلیل پیشرس اندامکها و پروتئینهای فتوسنتزی در مواجهه با خشکی میشود.
این هورمونها با تثبیت غشای تیلاکوئید، سنسیلهای نوری را از فوتواینهیبیشن حفظ میکنند. نکته جالب اینجاست که عصارههای باکیفیت، پیشسازهای هورمونی را به سلول تحویل میدهند؛ به این ترتیب خود گیاه تعیین میکند در بافتهای مختلف چه ترکیبی از هورمونها سنتز شوند. این ویژگی مانع از بروز اختلال در هماهنگی بین اندامهای هوایی و ریشه میگردد.
• پلیساکاریدهای ساختاری؛ محرکهای الیسیتوری و ابقای آب
بخش قابل توجهی از ماده خشک عصاره جلبکهای قهوهای را پلیساکاریدهایی مانند آلژینات (اسید آلژینیک)، فوکوئیدان و لامینارین شکل میدهند. آلژینات پلیمری است خطی، متشکل از مونومرهای دی-مانورونیک اسید و ال-گولورونیک اسید. ساختار شیمیایی این پلیمر توانایی فوقالعادهای در اتصال و گیراندازی یونهای چندظرفیتی و ملکولهای آب دارد که تشکیل یک هیدروژل بیولوژیکی پایدار در اطراف بافت را ممکن میسازد.
لامینارین به عنوان یک بتا-گلوکان شناخته شده، رفتاری کاملاً الیسیتوری بروز میدهد. گیرندههای ترابردکننده غشایی گیاه با دریافت این ساختارهای الیگوساکاریدی، فوراً حالت پاسخ دفاعی و تدافعی را روشن میکنند؛ بدون آنکه پاتوژن واقعی در محیط حضور داشته باشد. این آمادهباش سلولی زنجیرهای از ژنهای مسیر متابولیتهای ثانویه مانند فنیلپروپانوئیدها را بیدار میکند، ساختار کوتیکول برگ را تقویت مینماید و الاستیسیته دیواره سلولی را ارتقا میدهد تا تنش فیزیکی ناشی از تخلیه آب، پروتوپلاست را پاره نکند.
تشریح بحران سلولی: هجوم همزمان تنش خشکی و سمیت نمک
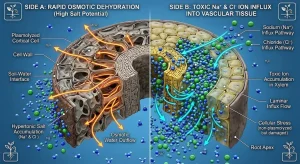
برای درک اثربخشی عصاره جلبک، ابتدا باید تخریبهای ناشی از تنش را بررسی کرد. تنش خشکی از طریق تخلیه آب آزاد بافت و کاهش فشار منفی زایلم آغاز میشود؛ اما تنش شوری یک معضل دو فازی مخرب است. فاز نخست آن یک تنش اسمزی فوری مشابه خشکی است، و فاز دوم شامل هجوم و انباشت یونهای کاتیونی سدیم Na+) و آنیونی کلر (Cl−) در سیتوپلاسم بافتهای فعال رویشی است.
- •
فاز ۱ (اسمزی سریع): افت پتانسیل آب خاک ← ناتوانی ریشه در جذب ← تنش آبی موضعی - •
فاز ۲ (سمیت یونی تاخیری): ورود Na+ و Cl- به سلول ← تخریب ساختار پروتئینها و اختلال در جذب K+
• تخریب تیلاکوئیدها و انفجار گونههای فعال اکسیژن (ROS)
هنگامی که دسترسی به آب به دلیل پتانسیل اسمزی منفی بستر کشت محدود میشود، روزنهها برای کاهش اتلاف تعرقی منقبض و مسدود میگردند. این انسداد فیزیکی ورود دیاکسید کربن به اتاقک زیر روزنهای را مسدود میسازد. با سقوط غلظت بینسلولی دیاکسید کربن (Ci)، پذیرنده پایانی زنجیره انتقال الکترون فتوسنتزی یعنی NADP+ تخلیه میشود.
الکترونهای پرانرژی حاصل از فوتولیز آب در فتوسیستم دو به دلیل غیاب NADP+، مستقیماً به سمت مولکولهای اکسیژن سرگردان هدایت میشوند. نتیجه مستقیم این مسیر انحرافی، شکلگیری رادیکال آنیون سوپراکسید (O2•−)، پراکسید هیدروژن (H2O2) و رادیکال شدیداً ناپایدار هیدروکسیل (OH) است. این رادیکالها چربیهای غیراشباع دولایه فسفولیپیدی غشای سلول و اندامکها را مورد حمله قرار داده و واکنش زنجیرهای پراکسیداسیون لیپید را فعال میسازند. شاخص اصلی این تخریب غشایی، تولید فزاینده ماده سمی مالوندیآلدئید (MDA) و خروج آبشاری پتاسیم به همراه نوکلئوتیدها از سیتوزول به فضای خارجسلولی است.
• رقابت ناعادلانه سدیم با پتاسیم در سایتهای کاتالیزوری آنزیمها
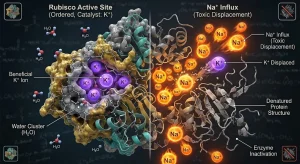
یون سدیم به دلیل داشتن شعاع هیدراته و بار الکتریکی بسیار نزدیک به یون پتاسیم، جایگاههای اتصالی کانالها و ترابردکنندههای غشایی نظیر کلسیم و پتاسیم را غصب میکند. بیش از پنجاه آنزیم متابولیکی بنیادین در سلول گیاهی منحصراً در حضور پتاسیم فعال میشوند؛ آنزیمهایی مانند رابیسکو (Rubisco) در چرخه کالوین و پیرووات کیناز در گلیکولیز.
وقتی نسبت غلظتی سدیم به پتاسیم در سیتوپلاسم فراتر از آستانه تحمل رود، سدیم جایگزین پتاسیم در این جایگاههای فعال کاتالیزوری شده و ساختار سوم پروتئینها را واسرشت (Denature) میکند. همچنین، ورود لجامگسیخته یون سدیم به ماتریکس استرومای کلروپلاست، کلروفیلهای متصل به پروتئینها را جابجا کرده و کلروز ساختاری شدیدی را پدید میآورد. این رویداد سیستم تولید انرژی سلول را متوقف میسازد.
مکانیسمهای فیزیولوژیک مهار تنش خشکی توسط ترکیبات جلبک
عصاره جلبک دریایی با ورود به چرخه ترابرد آوندی گیاه، سیستم ایمنی و متابولیکی آن را برای مبارزه با بیآبی بازتنظیم میکند. بیایید نحوه برقراری تعادل فیزیولوژیک در این شرایط را با هم مرور کنیم.
─ مسیر هورمونی (افزایش حساسیت به ABA بدون انسداد دائمی): مهار اتلاف آب
سیستم آنزیمی آنتیاکسیدان (SOD, CAT, APX): محافظت از دستگاه فتوسنتز
تنظیم دینامیک هدایت روزنهای و جلوگیری از تعرق هدردهنده
تصور عمومی بر این است که یک گیاه مقاوم در برابر خشکی صرفاً باید روزنههای خود را سریع ببندد تا قطرهای آب از دست نرود. این ایده اگرچه در نگاه نخست منطقی به نظر میرسد، از نظر فیزیولوژی زراعی به بنبست ختم میشود؛ چرا که انسداد کامل روزنه یعنی صفر شدن تثبیت دیاکسید کربن و گرسنگی کربنی گیاه.
ترکیبات زیستفعال عصاره جلبک دریایی هدایت روزنهای (gs) را بدون مسدودسازی کامل تثبیت دیاکسید کربن، به گونهای دینامیک مدیریت میکنند که راندمان مصرف آب آنی (iWUE) در دمبرگ و مزوفیل برگ تا ۳۵ درصد ارتقا یابد.
عصاره جلبک فرآیند درک سیگنال هورمون اسید آبسیزیک (ABA) را در سلولهای نگهبان روزنه بهینهسازی میکند. بتائینها و پپتیدهای ویژه موجود در عصاره، حساسیت گیرندههای غشایی PYR/PYL/RCAR را نسبت به دوزهای کم ABA درونزا بالا میبرند. در نتیجه، سلولهای نگهبان به جای بروز نوسانات ناگهانی هیدرولیکی، زاویه شکاف روزنهای را به ابعاد میکرومتری کاهش میدهند.
این فرآیند مانع از هدررفت رطوبت بافت شده، خروج بخار آب را مهار میکند و تبادل گازی مورد نیاز کلروپلاستها را فعال نگاه میدارد. به این شیوه، سنتز قندهای هگزوز ادامه مییابد و از تخریب فتوسیستم II ممانعت میشود.
تجمع اسمولیتهای درونی؛ تداوم آماس سلولی در پتانسیل منفی
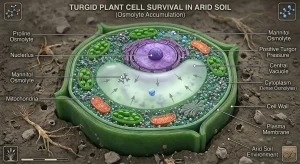
اسمولیتهای سازگار، ترکیبات آلی کوچکمولکول، خنثی و با بار الکتریکی متوازن هستند که حتی در غلظتهای بسیار بالا درون سلول، هیچگونه سمیت شیمیایی ایجاد نکرده و آرایش آب هیدراتاسیون پروتئینها را به هم نمیزنند. عصارههای جلبکی هم خود حاوی این ترکیبات هستند و هم گیاه را وادار به تولید بیشتر آنها در سیتوپلاسم میکنند.
- مانیتول و ترکیبات پلیال: این ترکیبات قند-الکلی دارای گروههای هیدروکسیل چندگانه بوده که به عنوان جایگزین پیوندهای هیدروژنی آب در ماتریس پروتئینی عمل میکنند. در تنش بیآبی شدید، مانیتول تجمعیافته ساختار سهبعدی آنزیمهای دخیل در مسیرهای بیوانرژتیک را محافظت میکند.
- گلایسین بتائین و آلکالوئیدهای بتائینی: ساختار چهارتایی آمونیومی بتائین سبب میشود تا به عنوان یک پوسته آبپوشان پایدار اطراف مولکولهای آب درون سلولی قرار گیرد و فشار اسمزی سیتوزول را در تراز بالاتری نسبت به واکوئول نگه دارد.
- پرولین درونزا: کاربرد بیواستیمولانتهای جلبکی سبب افزایش بیان ژن آنزیم پیرولین-۵-کربوکسیلات سنتتاز (P5CS) میشود. عصاره جلبک دریایی با تحریک ژن P5CS و مهار همزمان آنزیم پرولین دهیدروژناز، موجب تجمع حداکثری پرولین به عنوان پایدارکننده غشا و روبنده قدرتمند رادیکالهای هیدروکسیل در سلولهای ریشه میگردد. این مکانیسم سلول را قادر میسازد حتی در پتانسیلهای آب کمتر از ۱.۵- مگاپاسکال، آب جذب کند.
شبکه آنتیاکسیدانی آنزیمی: ارتقای فعالیت SOD، CAT و APX
حالا نگاهی به قلب دفاع سلولی بیندازیم. در مواجهه با تنش اسمزی، غلظت گونههای فعال اکسیژن در بافتهای برگ تا ۱۰ برابر شرایط عادی افزایش مییابد. اگر سلول ساختار آنزیمی کافی برای خنثیسازی این مواد اکسیدکننده نداشته باشد، کلروپلاستها تخریب میشوند.
عصاره جلبک به عنوان یک الیسیتور بیولوژیکی عمل کرده و بیان رونویسی ژنهای آنزیمهای آنتیاکسیدانی را فعال میسازد:
- سوپراکسید دیسموتاز (SOD): این آنزیم در خط اول نبرد دفاعی قرار دارد و یونهای فوقالعاده سمی سوپراکسید O2•− را با کاتالیز کردن پروتونها به پراکسید هیدروژن (H2O2) تبدیل میکند. جلبک دریایی غلظت فلزات کوفاکتور این آنزیم مانند مس، روی و منگنز را در بافت تثبیت مینماید.
- آسکوربات پراکسیداز (APX): در چرخه آسکوربات-گلوتاتیون کلروپلاست، APX وارد عمل شده و پراکسید هیدروژن حاصل از واکنش اول را با کمک اکیوالانهای کاهنده آسکوربات به آب تجزیه میکند و از تخریب بیومولکولها در سیتوپلاسم جلوگیری به عمل میآورد.
- کاتالاز (CAT): در پراکسیزومها، کاتالاز مقادیر تودهای H2O2 ناشی از تنفس نوری و بتااکسیداسیون اسیدهای چرب را تجزیه میکند. اعمال عصاره جلبک مانع از فروپاشی پروتئین کاتالاز بر اثر تنش حرارتی ناشی از خشکی میشود.
نتیجه این فرآیندها، کاهش شدید شاخص پراکسیداسیون چربیهای غیر اشباع و حفظ ضریب نشت الکترولیتها (Electrolyte Leakage Index) زیر مرز بحرانی ۲۰ درصد است. این تعادل غشایی، حیات فیزیولوژیک سلول را تحت تنش تضمین میکند.
مهار تنش شوری و بازتنظیم تعادل یونی با تکیه بر ترکیبات جلبکی
در مزارع و باغات تحت تنش شوری، بیشترین خسارت از حضور مقادیر کشنده یون سدیم در زایلم و بافتهای فتوسنتزی ناشی میشود. خاکهای شور پتانسیل اسمزی را کاهش میدهند و سدیم و کلر را با فشار وارد جریان ترابرد ریشه میکنند. در این فضا، عصاره جلبک عملکردی چندگانه برای بازگرداندن هومئوستازی یونی نشان میدهد.
تعدیل مسیر SOS و تخلیه سدیم از سیتوزول
یکی از مکانیسمهای اثباتشده گیاهی برای دفع یون سدیم از سیتوپلاسم، مسیر پیامرسانی حساسیت مفرط به نمک یا SOS (Salt Overly Sensitive Pathway) است. وقتی یون سدیم وارد سیتوزول میشود، افزایش موضعی کلسیم آزاد Ca2+ سنسور کلسیمی SOS3 را تحریک میکند. کمپلکس SOS3-SOS2 کیناز آنزیم ضدترابردکننده غشایی سدیم/پروتون (Na+/H+ antiporter یا SOS1) را که در غشای پلاسمایی مستقر است، با فرآیند فسفوریلاسیون فعال مینماید.
↓
تحریک سیگنالینگ کلسیم آزاد درونسلولی (Ca2+)
↓
فعالسازی کمپلکس SOS3 و SOS2 (پروتئین کیناز)
↓
فسفوریلاسیون و فعالسازی ترابردکننده SOS1 (در غشای پلاسمایی)
↓
پمپاژ فعال Na+ از سیتوزول به فضای آپوپلاست + ممانعت از ورود به کلروپلاست
(تثبیت پایدار نسبت فیزیولوژیک پتاسیم به سدیم: K+/Na+ > 1)
ترکیبات جلبک دریایی، به واسطه دارا بودن ساختارهای پلیالکترولیت و القاگرهای کاتیونی، پتانسیل عمل غشا را تثبیت کرده و با تحریک جریان ورودی کلسیم به عنوان پیامرسان دوم، فعالسازی ترابردکننده SOS1 را تسهیل میکنند. همزمان، بیان ژنهای ناقل خانواده HKT1 در سلولهای پارانشیم زایلم تنظیم میگردد تا یون سدیم پیش از رسیدن به بافت پارانشیم برگ از شیره خام خارج و قرنطینه شود. این سازوکار اجازه نمیدهد سدیم در استرومای کلروپلاستها تلنبار شود.
نقش مانیتول و بتائینها در محافظت از کمپلکسهای فسفولیپیدی
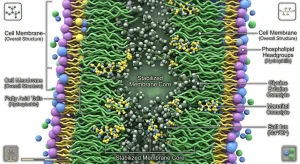
شوری ساختار کمپلکسهای پروتئینی-لیپیدی دیواره و غشای سلول را مختل میسازد. نمک با حل کردن پروتئینهای محیطی غشا، نفوذپذیری انتخابی آن را نابود میکند. بتائینها و استرولهای گیاهی موجود در عصارههای غلیظ جلبک، در فضای بین دو دم آبگریز اسیدهای چرب غشا قرار میگیرند. این چینش مانع از مایعشدن بیش از حد یا برعکس، کریستالیزه شدن فاز ژلی فسفولیپیدها در تنش نمک میگردد.
حفظ یکپارچگی غشای سلولی به واسطه بتائینهای عصاره جلبک، مانع از خروج یونهای پتاسیم از سلول شده و نسبت فیزیولوژیک کاتیونهای کلیدی را در محدوده پایدار نگه میدارد. زمانی که پتاسیم در سیتوپلاسم حفظ شود، سنتز پروتئین متوقف نمیشود و گیاه دچار خزان زودرس ناشی از سمیت شوری نخواهد شد.
جدول جامع مقایسهای: رفتار بافتهای گیاهی در مواجهه با خشکی و شوری
| پارامتر فیزیولوژیک و بیوشیمیایی | گیاه شاهد (تحت تنش، بدون مداخله) | گیاه تحت تیمار با عصاره جلبک دریایی | سازوکار ایجاد تمایز در بافت |
|---|---|---|---|
| راندمان فتوسیستم دو (Fv/Fm) | سقوط به زیر ۰.۵۵ (بروز فتواینهیبیشن) | حفظ پایداری در محدوده ۰.۷۲ تا ۰.۸۰ | محافظت از پروتئین D1 و غشاهای تیلاکوئیدی |
| تجمع مالوندیآلدئید (MDA) | افزایش شدید (پراکسیداسیون لجامگسیخته غشا) | افت ۴۰ تا ۵۵ درصدی شاخص تخریب | پاکسازی مداوم رادیکالهای هیدروکسیل توسط مانیتول |
| نسبت درونسلولی K+ / Na+ | سقوط به کمتر از ۰.۴ در بافت ساقه و برگ | تثبیت بالای ۱.۲ در تمام بافتهای سبز | فعالسازی مسیر SOS1 و کنترل ترابرد توسط HKT1 |
| شاخص پایداری غشا (MSI) | کاهش محسوس به دلیل نشت شدید یونها | حفظ پایداری ساختار لیپیدی بالای ۷۵٪ | پیوند فضایی بتائینها با لایههای فسفولیپیدی |
| پتانسیل تورژسانس برگ (Ψp) | سقوط کامل و بروز پژمردگی دائمی | حفظ مثبت تورژسانس با جذب آب اسمزی | تجمع غلظت بالای پرولین، مانیتول و سایر اسمولیتها |
| فعالیت سیستم آنزیمی آنتیاکسیدان | تخلیه و غیرفعالسازی تدریجی آنزیمها | تحریک ۱.۵ تا ۲.۵ برابری ژنهای SOD و APX | تحریک الیسیتوری ناشی از پلیساکارید لامینارین |
پاسخ مستقیم و مستند به پرسشهای بنیادین زراعی
۱. مسیر ملکولی محافظت از فتوسیستم II در برابر تخریب نوری چیست؟
تنشهای اسمزی با ایجاد قفل کربنی، فرآیند خاموشسازی غیرفتوشیمیایی (NPQ) را مختل میکنند. عصاره جلبک دریایی با تحریک ترابرد الکترونهای فتوسنتزی و تثبیت مجموعه پروتئینی D1 در فتوسیستم دو (PSII)، مانع از تخریب کلروفیل توسط الکترونهای سرگردان و بروز کلروز میشود. عصاره جلبک با فراهمسازی ترکیبات پیشساز پلیفنولی و کارتنوئیدها، انرژی مازاد نوری را به صورت حرارت غیرمخرب دفع میکند.
۲. محلولپاشی برگی در برابر مصرف خاکی عصاره جلبک؛ کدامیک سمیت یونی را بهتر مهار میکند؟
این دو روش دو هدف بیولوژیک کاملاً متفاوت را دنبال میکنند:
مصرف خاکی (تزریق ریشهای): آلژیناتهای جلبک ساختار خاک را بهبود داده و با جذب کاتیونهای دوظرفیتی و یکظرفیتی، ظرفیت تبادل کاتیونی در ریزوسفر را تعدیل میکنند. با این حال، در مهار مستقیم سمیت فیزیولوژیک سدیم در بافتهای هوایی راندمان کندتری دارند.
محلولپاشی برگی: ترابرد سریع از طریق روزنهها و سلولهای اپیدرم سبب تحریک فوری مسیرهای آنتیاکسیدانی در مزوفیل برگ و سلولهای همراه آوند آبکش میشود.
برای مقابله با شوک ناگهانی خشکی و شوری، محلولپاشی برگی به دلیل رساندن مستقیم اسمولیتها به برگ و حفظ دستگاه فتوسنتزی اولویت دارد؛ در حالی که مصرف خاکی اثرات اصلاحی ساختار خاک را در میانمدت تامین میکند.
– شوک اسمزی، گرمای سوزان یا شوری موضعی برگ: محلولپاشی برگی (پاسخ سریع متابولیک)
– تخریب خاکدانهها و شوری مداوم بستر ریشه: مصرف خاکی (بهبود بیولوژیک ریزوسفر)
۳. اسمولیتهای عصاره چگونه فشار آماس را در خاک خشک حفظ میکنند؟
اسمولیتها پتانسیل اسمزی سیتوپلاسم (Ψs) را بدون تغییر در پتانسیل ماتریک منفیتر میکنند. طبق قوانین بیوفیزیک، آب تمایل دارد از نقطه با پتانسیل پتانسیل آب بالاتر به نقطه با پتانسیل منفیتر جریان یابد. وقتی غلظت گلایسین بتائین و مانیتول در سیتوپلاسم متراکم شود، پتانسیل آب درون سلول به مراتب منفیتر از ماتریکس خاک مجاور ریشه میگردد. این اختلاف شیب اسمزی باعث حرکت آب به سمت ریشهها در خاک کمرطوبت میشود.
۴. آیا مصرف عصاره جلبک راندمان فتوسنتز را قربانی تنظیم روزنه میکند؟
خیر. ترسی عمومی وجود دارد که بیواستیمولانتهای ضدتنش ممکن است با بستن کامل منافذ برگ، رشد گیاه را متوقف کنند. بیواستیمولانتهای استاندارد برگرفته از جلبکهای قهوهای، بستهشدن هیستریک روزنهها را تعدیل مینمایند. این ترکیبات از نوسانات شدید باز و بسته شدن روزنهها جلوگیری میکنند و آن را در یک قطر دیافراگمی بهینه نگه میدارند. به این ترتیب، بدون اتلاف رطوبت از طریق تعرق بادپناهی، ورود دیاکسید کربن برای چرخههای آنزیمی ادامه مییابد.
۵. کدام تکنولوژی استخراج بیشترین خلوص زیستی را تضمین میکند؟
روشهای سنتی استخراج نیازمند فرآیندهای هیدرولیز قلیایی سنگین تحت دما و فشار بالا (با استفاده از هیدروکسید سدیم یا پتاسیم) هستند. این فرآیندها گرچه حلالیت را بالا میبرند، بخش بزرگی از فیتوهورمونها و پلیساکاریدهای زنجیرهبلند را تخریب میکنند. تکنیکهای استخراج مکانیکی سرد (Cold Micronization) یا هضم آنزیمی، با حذف شوک حرارتی و مواد شیمیایی تهاجمی، زنجیرههای الیگوساکاریدی و بتائینهای حساس به گرما را دستنخورده نگه میدارند و بالاترین کارایی ضدتنش را ارائه میدهند.
زمانبندی طلایی مداخله: پیشتیمار در برابر درمان واکنشی
مکانیسم فعالیت ترکیبات جلبکی بر پایه «آمادهباش دفاعی» یا Priming استوار است. یعنی اگر قصد داریم درختی را در برابر آب آبیاری با هدایت الکتریکی (EC) بالا یا قطع مدار آبیاری تابستانه ایمن سازیم، باید پیشتیمار را ۴۸ تا ۷۲ ساعت پیش از ورود به تنش اجرا کنیم.
در این بازه زمانی، لامینارین و مانوز موجود در عصاره به گیرندههای غشایی متصل شده و ماشین بیوسنتز آنزیمهای آنتیاکسیدانی را فعال میسازند. با آغاز تنش در محیط، سلول از قبل مجهز به غلظت بالایی از پراکسیدازها و اسمولیتها بوده و اجازه انباشت مخرب ROS را به متابولیسم گیاه نخواهد داد. مصرف بعد از تنش تنها به بازسازی بافت کمک میکند، اما جلوی افت عملکرد را به طور کامل نمیگیرد.
ویژگیهای زمان مصرف: ترجیحاً در ساعات ابتدایی صبح (پیش از رسیدن به نقطه بیشینه تشعشع خورشیدی) یا در هنگام غروب آفتاب انجام شود. این زمانبندی فرصت کافی به سلولهای روزنه میدهد تا قطرات آئروسل را در رطوبت نسبی بالا بدون تبخیر سطحی جذب کنند.
- افزودن سورفکتانت غیرطیفی به منظور کاهش زاویه تماس قطرات روی برگ
- تنظیم دقیق pH آب مخزن در محدوده ۵.۵ تا ۶.۲ با استفاده از بافرها
- خودداری از اختلاط همزمان با کودهای روغنی یا آلایندههای حاوی مس سنگین
خطاهای رایج در اختلاط و کاربرد میدانی
بیایید تعارف را کنار بگذاریم. اگر بهترین بیواستیمولانت دنیا را خریداری کنید اما آن را در تانک سمپاش با ترکیباتی مثل بردو، سموم مسی سنگین، یا مقادیر بالای کودهای با بنیان گوگردی مخلوط نمایید، جز تولید لجن شیمیایی و سوزاندن بافت گیاه حاصل دیگری نخواهید داشت!
فرمولاسیونهای عصاره جلبک دریایی به علت غنای گروههای باردار کربوکسیلیک و فنولی، خاصیت کیلیتور طبیعی دارند. در نتیجه:
- ناسازگاری با کلسیم بالا: اختلاط مستقیم فرمولاسیونهای پودری جلبک با نیترات کلسیم در غلظتهای بالا باعث تشکیل رسوب ژلاتینی آلژینات کلسیم و گرفتگی نازلها میشود. برای مصرف همزمان، حلکردن در تانکهای جداگانه یا انتخاب محصولات اختصاصی ارتقایافته ضروری است.
- پرهیز از آبهای قلیایی و سخت: آبهای سنگین با مقادیر بالای کربنات مانع از نفوذ برگی مولکولهای زیستفعال جلبک میگردند. استفاده از تنظیمکنندههای pH برای رساندن آب مخزن به حدود ۵.۵ تا ۶.۲ جهت نفوذ سریع از مومهای کوتیکولی توصیه میشود.
استانداردسازی و آنالیز فرآیند استخراج عصاره؛ خط تمایز کارایی و بیاثری
کارایی نهایی در مزرعه به شیوه استخراج در کارخانه تولید بستگی دارد. فرآیندهای استخراج را میتوان به سه دسته اصلی تفکیک کرد:
- هیدرولیز قلیایی داغ: تیره، محلول و ارزان، اما فاقد پپتیدهای پروتئینی و آنزیمهای حساس
- روش تخمیر و هضم آنزیمی: حفظ عصاره غنی از فیتوهورمونها و پلیساکاریدهای خردشده
- میکرونیزاسیون و شکست سلولی تحت فشار سرد: حفظ کامل ساختارهای پروتئینی و بیواکتیو
نقش عصاره جلبک دریایی در کاهش تنش خشکی و شوری گیاه از طریق یک پاسخ چندعاملی هماهنگ اعمال میشود: این ترکیب همزمان ظرفیت اسمزی سیتوپلاسم را ارتقا میدهد، سامانههای آنتیاکسیدانی را فعال میسازد و از ورود یونهای مخرب به اندامکهای سلولی ممانعت به عمل میآورد. این ماده نه یک کود ساده است و نه معجزهای ناشناخته، بلکه ترکیبی زیستفعال است که بر پایههای علم فیزیولوژی و بیوشیمی گیاهی عمل میکند.
تغییرات اقلیمی، کاهش ذخایر آبهای زیرزمینی و شور شدن اراضی زراعی چارهای جز استفاده از ابزارهای بیوتکنولوژیک برای ما باقی نگذاشته است. بیواستیمولانتهای جلبک دریایی به عنوان ابزاری ارگانیک و علمی، چرخه سوختوساز گیاه را در پتانسیلهای منفی آب حفظ کرده و تداوم تولید در شرایط سخت محیطی را ممکن میسازند. با اعمال پیشتیمار صحیح و انتخاب فرآوردههای حاصل از استخراج سرد، میتوان اثرات منفی خشکی و شوری را به میزان چشمگیری تعدیل کرد.
اطلاعات تماس و پشتیبانی:
- • ایران- تهران- میدان هفت تیر- خیابان بهار شیراز- ساختمان رویال- طبقه دوم- واحد 7
- • کد پستی: 1575615457
- • پست الکترونیکی: www.kalatakco@yahoo.com
- • تماس:
88849551 –
88849552 –
88849554 - • 09120542252
- • 09120542246
- • صفحه رسمی اینستاگرام: kalatak.company
- • ایمیل: kalatakco@yahoo.com
- • https://rubika.ir/kalatakco :روبیکا
- • صفحه رسمی اینستاگرام: damafarm.company
سوالات متداول
عصاره جلبک دریایی چگونه با سمیت نمک در گیاه مبارزه میکند؟
عصاره جلبک از طریق فعالسازی مسیر پیامرسانی SOS و پمپ غشایی SOS1، خروج یون سدیم از سیتوپلاسم را تسریع میبخشد. همچنین با تنظیم بیان ژنهای HKT1 و حفظ نسبت بحرانی پتاسیم به سدیم، مانع از تخریب کلروپلاست و بروز سمیت نمک در بافتهای فعال رویشی گیاه میشود.
چرا زمان طلایی مصرف جلبک پیش از بروز تنش خشکی است؟
ترکیبات جلبک بر اساس آمادهباش سلولی (Priming) عمل میکنند. مصرف عصاره ۴۸ تا ۷۲ ساعت قبل از وقوع تنش، با تحریک ژنهای سنتز آنتیاکسیدانها نظیر SOD و تجمع مانیتول، ساختار سلول را مسلح میسازد تا در زمان بحران از انباشت گونههای مخرب اکسیژن و افت رطوبت ممانعت شود.
تفاوت اثر محلولپاشی برگی و مصرف خاکی عصاره جلبک چیست؟
محلولپاشی برگی از طریق تحریک آنی آنزیمهای دفاعی و تعدیل تعرق روزنهای، پاسخی فوری به شوک بیآبی و شوری موضعی برگ میدهد. در مقابل، مصرف خاکی با اثر آلژیناتها بر بهبود دانهبندی و تعدیل تبادل کاتیونی ریزوسفر، فرآیند اصلاحی ریشه را در بازه زمانی میانمدت تقویت مینماید