1. نقش عصاره جلبک دریایی در کاهش تنش خشکی و شوری گیاه
نوامبر 1, 2026
تفاوت جذب کلسیم از ریشه و برگ؛ چرا انتقال کلسیم به میوه دشوار است?
یون کلسیم در گیاهان ساختار متحرک ندارد و به صورت یکطرفه فقط از طریق جریان شیره خام در آوند چوبی حرکت میکند که انرژی محرکه آن پتانسیل تعرق برگهاست. انتقال کلسیم از برگ به میوه از طریق آوند آبکش به دلیل غلظت فوقالعاده پایین کلسیم سیتوپلاسمی در سلولهای غربالی عملاً غیرممکن است. این یعنی محلولپاشی کلسیم روی برگها هیچ کمکی به تأمین کلسیم بافت میوه نخواهد کرد و جذب ریشهای نیز به علت افت شدید تعرق میوه در مراحل پایانی رشد، از هدایت کلسیم به درون ساختار زایشی بازمیماند.
در حوزه تغذیه باغات و مزارع پرتولید، شناخت تفاوت جذب کلسیم از ریشه و برگ کلید حل معضلات پرهزینهای مانند لکه تلخی سیب، پوسیدگی گلگاه گوجهفرنگی و عارضه نوکسوختگی سبزیجات برگی است. کلسیم (Ca2+) یک عنصر ساختاری کمنظیر است که مانند سیمان سلولی، پکتین موجود در تیغه میانی دیواره سلولها را تثبیت میکند و استحکام غشاهای پلاسمایی را زنده نگه میدارد. اگر کلسیم نباشد، نشت سیتوپلاسمی رخ میدهد، دیواره سلولی در هم میشکند و بافت دچار فروپاشی فیزیولوژیک میشود. با این حال، اکثر باغداران و حتی کارشناسان از خود میپرسند چرا علیرغم کوددهی سنگین ریشهای و چندین نوبت سمپاشی برگی، باز هم مقاطع داخلی میوه علائم فروپاشی سلولی ناشی از کمبود کلسیم را نشان میدهند؟ پاسخ این پرسش در قوانین بیوفیزیک گیاهی و سازوکارهای سلولی ترانزیت این یون دوظرفیتی نهفته است.
کالبدشکافی بیوفیزیکی: جذب ریشهای کلسیم چگونه کار میکند؟
جذب کلسیم از ریشه گیاهان فرآیندی کاملاً انتخابی و محدود به نواحی بسیار جوان سیستم ریشهای است که ورود آن بر پایه پدیده جریان تودهای (Mass Flow) در آوند چوبی صورت میپذیرد. بر خلاف یونهایی نظیر نیترات یا پتاسیم که از پمپهای فعال غشایی با مصرف مستقیم ATP بهره میبرند، یون کلسیم برای صعود در سیستم هیدرولیکی گیاه، متکی به اختلاف پتانسیل آب ناشی از تعرق اندام هوایی است. این انتقال از یک کانال آپوپلاستی خاص عبور میکند که در ادامه به تشریح دقیق آن خواهیم پرداخت.
گذرگاه آپوپلاستی و نقش حیاتی مناطق تمایزنیافته نوک ریشه
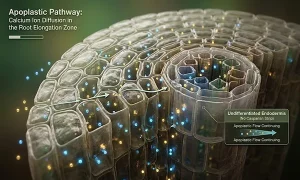
مسیر ورود آب و عناصر غذایی به داخل استوانه آوندی ریشه شامل دو بخش آپوپلاست (فضای آزاد بین سلولی و دیوارههای سلولی) و سیمپلاست (فضای درونسلولی متصل به هم از طریق پلاسمودسمها) است. در بافتهای تمایزیافته و مسن ریشه، یک لایه محافظتی درونپوستی به نام آندودرم تشکیل میشود. سلولهای آندودرم دارای نواری از جنس ترکیبات آبگریز سوبرین و لیگنین موسوم به «نوار کاسپاری» هستند. نوار کاسپاری در لایه آندودرم ریشه همانند یک سد فیزیکی مانع عبور غیرفعال کلسیم از مسیر آپوپلاست شده و جریان کاتیونهای دوظرفیتی را به سمت استوانه مرکزی متوقف میکند.
حالا ببینید، کلسیم چگونه این مانع غیرقابل نفوذ را دور میزند؟ پاسخ ساده است: فقط از مناطقی وارد میشود که این سد هنوز ساخته نشده است! در چند میلیمتر ابتدایی نوک ریشههای جوان (ناحیه طویلشدن و مریستم آپیکال) و همچنین در مناطقی که ریشههای جانبی با شکافتن لایه درونپوست ظاهر میشوند، نوار کاسپاری هنوز رسوب نکرده یا ساختار آن دچار گسیختگی موقت است. در این مناطق، یونهای Ca2+ بدون نیاز به عبور از غشای زنده، از لابهلای ماتریکس سلولزی دیواره سلولی (مسیر آپوپلاستی) سر میخورند و وارد لومن آوندهای چوبی میشوند. این نکته فیزیولوژیک یک پیام مدیریتی بسیار تند دارد: اگر خاک شما بر اثر شوری، سنگینی بافت، خفگی ناشی از آبیاری غرقابی یا هجوم نماتدها و قارچهای پیتیوم و فیتوفتورا، نوک ریشههای سفید و فعال خود را از دست بدهد، جذب ریشهای کلسیم متوقف خواهد شد، حتی اگر بستر خاک از کربنات یا سولفات کلسیم اشباع باشد.
[نوک ریشه جوان (فاقد نوار کاسپاری)] ──(مسیر آپوپلاست: دیواره سلولی)──► [آوند چوبی Xylem]
[ریشه مسن (نوار کاسپاری مستقر)] ────(بلوکه شدن آپوپلاست)───┤ [جریان تعرق به سمت بالا]
صعود در آوند چوبی: تعرق و نقش میل ترکیبی یون کلسیم با دیواره آوند
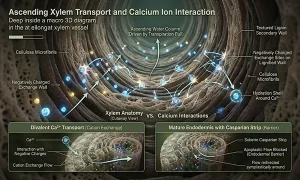
وقتی یون کلسیم به آوند چوبی رسید، سفر عمودی آن به سمت اندام هوایی آغاز میشود. نیروی محرک اصلی در این مسیر، کشش تعرقی برآمده از تبخیر مولکولهای آب از منافذ روزنههای برگ است. با خروج آب از روزنهها، فشار منفی هیدرولیکی (تنش کششی) در ستون آب داخل آوند چوبی ایجاد میشود و ستون شیره خام را بالا میکشد.
نکته جالب اینجاست که یونهای کلسیم در حین این صعود، آزادانه و با سرعتی برابر با مولکولهای آب حرکت نمیکنند. دیوارههای آوند چوبی متشکل از سلولز، همیسلولز و لیگنین هستند که حاوی گروههای کربوکسیل باردار منفی (R-COO–) میباشند. این دیوارهها مانند یک ستون کروماتوگرافی تبادل کاتیونی عمل میکنند. یونهای دوظرفیتی کلسیم به دلیل چگالی بار الکتریکی بالا، پیدرپی جذب این گروههای منفی میشوند و دوباره آزاد میگردند. در زبان بیوفیزیک، به این حرکت کند ناشی از برهمکنش الکترواستاتیک دیواره آوند چوبی، پدیده ریتاردیشن یا تاخیر هیدرولیکی کلسیم میگویند. برای حرکت سریع کلسیم در این بزرگراه هیدرولیکی، گیاه نه تنها به جریان تعرق شدید نیاز دارد، بلکه نیازمند همراهی سایر آنیونها (مانند نیترات) است تا اثر خنثیسازی نسبی را اعمال کنند.
فیزیولوژی جذب برگی کلسیم؛ آیا محلولپاشیکلسیم برگ به نفع میوه است؟
محلولپاشی برگی کلسیم یکی از متداولترین توصیهها در کشاورزی تجاری است، اما بیایید با حقایق غشایی مواجه شویم: برگ برای فتوسنتز و تبخیر آب آفریده شده است، نه برای بلعیدن املاح معدنی. ورود کاتیونها از سطح بیرونی برگ، مشروط به غلبه بر پیچیدهترین سپر زیستی گیاه، یعنی اپیدرم پوشیده از لایه کوتیکول است.
ساختار کوتیکول و مسیر عبور یونها از منافذ قطبی (Aqueous Pores)
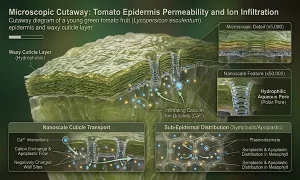
لایه بیرونی برگ گیاهان توسط کوتیکول پوشانده شده است که ساختاری به شدت آبگریز (Hydrophobic) دارد. کوتیکول از یک شبکه ماتریکسی از جنس کوتین تشکیل شده که با مومهای درونکوتیکولی و برونکوتیکولی نامنظم مهروموم شده است. این سد چربیدوست به هیچ وجه اجازه عبور مستقیم به یونهای باردار و هیدراته کلسیم (Ca2+·6H2O) را نمیدهد.
کلسیم برای نفوذ از سطح برگ، متکی بر ریزمنافذ آبی یا «منافذ قطبی» (Aqueous Pores) موجود در کوتیکول است. این منافذ در واقع ترکها و فواصل ریز مولکولی میان پلیمرهای کوتین و گروههای باردار پکتین هستند که قطر دهانه آنها کمتر از یک نانومتر (حدود ۰.۴ تا ۰.۸ نانومتر) برآورد میشود.
برای اینکه درک کنید نفوذ از این مسیر چقدر بحرانی است، به این معادله پایهای فکر کنید: شعاع یونی کلسیم با قشر هیدراته آن حدود ۰.۴۱ نانومتر است. یعنی اندازه یون کلسیم درست لببهلب اندازه خود منفذ است! ورود این یون، منوط به حل شدن کامل در فاز مایع پیوسته روی سطح برگ است. به همین علت، به محض اینکه قطره سمپاشی خشک شود، نفوذ کلسیم از طریق این منافذ قطبی کوتیکول به طور ۱۰۰٪ متوقف میگردد. جذب برگی فقط زمانی رخ میدهد که رطوبت نسبی هوا بسیار بالا باشد و ماده کلسیمی بر روی برگ به فرم هیدراته باقی بماند.
بر اساس قوانین بنیادین فیزیولوژی سلولی، هیچ فرمولی از کلسیم سیستمیک وجود ندارد که پس از جذب توسط برگ بتواند از طریق آوند آبکش به اندامهای دیگر مهاجرت کند.
واقعیت ماجرا این است: زمانی که یون کلسیم از کوتیکول برگ عبور کرد و به فضای آپوپلاستی پارانشیم برگ رسید، در همان نقطه به زنجیر کشیده میشود. دیوارههای سلولی برگ دارای ظرفیت تبادل کاتیونی فوقالعاده بالایی هستند. در آنجا آنزیم پکتین متیل استراز، گروههای متیل را از پکتین جدا کرده و زنجیرههای پلیگالاکتورونیک اسید را با بارهای منفی آزاد میسازد. یونهای کلسیم با بالاترین میل ترکیبی ممکن به این جایگاهها میچسبند تا ساختار نامحلول «پکتات کلسیم» را شکل دهند.
حتی اگر مقداری کلسیم مازاد بر ظرفیت دیواره در برگ باقی بماند، به واکوئلهای سلولهای مزوفیل برگ پمپ شده و به شکل کریستالهای اگزالات کلسیم رسوب داده میشود. خروج کلسیم از برگ از نظر فیزیولوژیک غیرممکن است. این یعنی محلولپاشی شاخ و برگ سیب، گردو یا گوجهفرنگی فقط و فقط برگ را سیراب و شکننده میکند و حتی یک میکروگرم از آن کلسیم به میوهای که چند سانتیمتر آنطرفتر به شاخه آویزان است، مهاجرت نخواهد کرد.
چرا کلسیم به میوه نمیرسد
مانع اول: سمّیت سیتوپلاسمی و ممنوعیت خروج کلسیم از طریق آوند آبکش
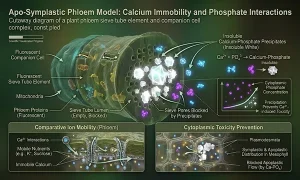
- نقش پیامرسان ثانویه (Second Messenger): در سیتوزول تمام سلولهای زنده یوکاریوتی، تغییرات لحظهای و بسیار ناچیز در غلظت کلسیم آزاد (Ca2+)، سیگنال کلیدی برای پاسخ به تنشها، سیگنالدهی هورمونی و تنظیم تقسیم سلولی است. غلظت کلسیم آزاد سیتوپلاسمی باید همواره در محدوده بسیار باریک ۱۰۰ تا ۲۰۰ نانومولار تثبیت شود. اگر این رقم به سطوح میکرومولار برسد، سلول دچار اختلال پیامرسانی سیستماتیک شده و پروتکل آپوپتوز یا خزان سلولی فعال میگردد.
- شیمی رسوب فسفات و نابودی متابولیسم انرژی: شیره پرورده آوند آبکش دارای pH بازی (حدود ۷.۸ تا ۸.۵) و مقادیر فراوانی از مولکولهای نوکلئوتیدی حاوی فسفات پرانرژی (نظیر ATP و Pi) است. اگر غلظت کلسیم در چنین محیطی بالا برود، یون کلسیم سریعاً با یون فسفات پیوند خورده و به فسفات کلسیم نامحلول (Ca3(PO4)2) تبدیل میشود. نتیجه؟ از یک سو لولههای غربالی فلوئم مسدود شده و جریان کربوهیدرات قطع میگردد، و از سوی دیگر ستون فقرات متابولیسم انرژی سلول منهدم میشود.
به همین دلایل تکاملی، سلولهای همراه و لولههای غربالی مجهز به پمپهای کلسیم-ATPase بسیار نیرومندی هستند که هر یونی از کلسیم را که تصادفاً قصد ورود به شیره فلوئم داشته باشد، با مصرف انرژی بیرون میرانند. غلظت کلسیم آزاد در شیره پرورده آوند آبکش کمتر از ۰.۱ میکرومولار است، در حالی که غلظت پتاسیم در همان شیره به بیش از ۱۰۰ میلیمولار میرسد. کلسیم اساساً اجازه ندارد در فلوئم سفر کند.
مانع دوم: افت شدید هدایت هیدرولیکی و تعرق میوه همزمان با بلوغ
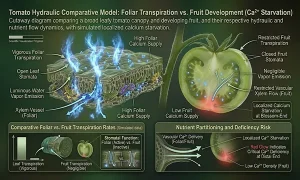
در ابتدای فصل و هنگام تشکیل تخمدان و گل، میوه کوچک به دلیل نسبت سطح به حجم بالا و حضور روزنههای فعال روی پوست، همانند یک برگ کوچک تعرق میکند. در این بازه، آوند چوبی فعال است و کلسیم همراه با آب وارد میوه میشود.
اما داستان با آغاز فاز رشد سلولی به طور ناگهانی دگرگون میشود. با بزرگ شدن میوه، چند اتفاق فیزیکی بهطور همزمان میافتد:
- نسبت سطح به حجم میوه به صورت توانی کاهش مییابد.
- لایههای متراکمی از واکس و چربی مومی بر روی پوست تشکیل میشود تا جلوی از دست رفتن آب میوه را بگیرد.
- روزنهها تحلیل رفته، غیرفعال شده و به عدسکها (Lenticels) تبدیل میشوند.
نتیجه این رخدادها چیست؟ نرخ تعرق میوه در مقایسه با برگهای اطراف به کمتر از ۱ به ۵۰ میرسد. حالا بیایید هیدرولیک گیاه را در یک روز گرم تابستانی تصور کنیم: برگهای پرپشت با باز کردن هزاران روزنه، کشش پتانسیل آبی معادل ۱.۵- مگاپاسکال ایجاد کردهاند، در حالی که میوه با پوشش کوتیکولی نفوذناپذیر خود، پتانسیل آبی بسیار کمتری برای مکش ایجاد میکند. آوند چوبی مانند لوله آبی است که شیرهای خروجی آن به سمت برگها باز است و شیر متصل به میوه تقریباً مسدود شده است. تمام کلسیم بارگیریشده در شیره خام به سمت سایهانداز رویشی (برگها) هدایت میشود و بافت در حال انبساط میوه گرسنه کلسیم میماند. در فاز دوم رشد، میوه بیش از ۹۵ درصد حجم آب و ماده خشک خود را از طریق آوند آبکش (حاوی قند و بدون کلسیم) دریافت میکند، نه از آوند چوبی!
مانع سوم: جهتگیری قطبی اکسین و رقابت نابرابر برگ و میوه
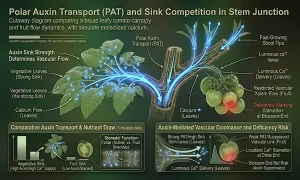
انتقال کلسیم ارتباط تنگاتنگی با هورمون اکسین (اینکولاستیک اسید یا IAA) دارد. بر اساس تئوری فیزیولوژیک انتقال قطبی اکسین-کلسیم، یون کلسیم تمایل دارد در جهتی خلاف جهت حرکت قطبی اکسین جابهجا شود.
نوک شاخسارههای در حال رشد رویشی (شاخه و برگهای جوان پرورده) مقادیر بسیار عظیمی از اکسین سنتز میکنند. این جریان شدید سنتز و خروج اکسین، شرایط را برای باز شدن مسیرهای آوند چوبی و پمپاژ یونهای کلسیم به سمت نوک شاخهها به شدت تقویت میکند. در سوی دیگر، بافت میوه به ویژه در مراحل پس از توقف تقسیم سلولی، غلظت اکسین کمتری نسبت به شاخسارههای رویشی قوی تولید میکند. اگر مدیریت باغ بهگونهای باشد که رشد رویشی نامتعادل (شاخههای بلند، آبدار و نرکها) تحریک شود، این شاخهها مانند جاروبرقی هیدرولیکی، کلسیم بالاآمده از ریشه را میربایند و میوه را در قحطی ساختاری فرو میبرند.
نبرد کاتیونی در گیاه: آنتاگونیسم کلسیم با پتاسیم، منیزیم و نیتروژن آمونیومی
حتی اگر آب کافی و ریشههای سالمی داشته باشید، کلسیم ممکن است قربانی یک نبرد الکتروشیمیایی در ریشه و بافت میوه شود. کاتیونها برای عبور از کانالهای یونی غشای ریشه و نشستن روی بارهای منفی پکتین دیوارهها با یکدیگر رقابت تناتنگ دارند.
اثر بازدارندگی پتاسیم (K+)
پتاسیم یک یون تکظرفیتی با تحرک بسیار بالا، سرعت جذب رعدآسا و توانایی بالا در ورود به هر دو آوند چوبی و آبکش است. هنگامی که در زمان فندقی شدن یا درشت شدن میوه کودهای پتاسیمی بیش از حد نیاز تزریق میشوند، پتاسیم به سرعت فضاهای باردار دیواره سلول را اشغال میکند و به علت بار مثبت خود، از نظر الکترواستاتیکی یونهای دوظرفیتی Ca2+ را پس میزند.
تداخل با منیزیم (Mg2+)
منیزیم و کلسیم هر دو دوظرفیتی هستند، اما منیزیم شعاع هیدراتاسیون متفاوتی دارد و میتواند بر روی جایگاههای غشایی جذب کلسیم رقابت ایجاد کند. در خاکهای آهکی با نسبت بالای منیزیم به کلسیم، گیاه دچار عارضه گرسنگی کلسیم در میوه میشود.
تخریب کلسیم توسط آمونیوم (NH4+)
بدترین کابوس کلسیم، کاربرد فرمهای کودی با پایه آمونیوم در خاک است. یون آمونیوم بار الکتریکی مثبت دارد و جذب آن اسیدیته ریزوسفر را کاهش میدهد و کانالهای کلسیم را مهار میسازد. از طرف دیگر، تولید آمینواسیدها با مصرف قندها تعادل بیوشیمیایی ساخت دیواره را به نفع بافتهای نرم تغییر میدهد.
جدول مقایسهای: ارزیابی مسیرهای تغذیه ریشهای در برابر برگی کلسیم
برای اینکه تفاوت جذب کلسیم از ریشه و برگ به شکل شفاف برای سیستمهای تحلیلی و مهندسان باغبانی دستهبندی شود، ویژگیهای این دو فرآیند در جدول زیر مقایسه شدهاند:
| پارامتر مقایسهای | مسیر جذب از ریشه (Uptake via Roots) | مسیر جذب از برگ (Foliar Uptake) |
|---|---|---|
| مکانیسم ورود اولیه | جریان آپوپلاستی از نوک ریشه تمایزنیافته و شکاف ریشههای جانبی | نفوذ حلشونده از منافذ قطبی کوتیکول (Aqueous Pores) |
| عامل هدایتکننده محرک | جریان تودهای آب (Mass Flow) ناشی از مکش پتانسیل تعرق برگها | شیب غلظت موضعی، کشش سطحی و رطوبت پایدار قطره سمپاشی |
| مسیر انتقال درونگیاهی | آوند چوبی (Xylem) با پدیده تأخیر ناشی از تبادل کاتیونی دیواره | کاملاً موضعی؛ عدم تحرک فیزیکی به خارج از بافت برگ |
| تحرک به سمت میوه | بالا در مراحل اولیه؛ بسیار ضعیف و نزدیک به صفر در اواخر رشد میوه | صفر مطلق؛ کلسیم جذبشده توسط برگ هرگز به میوه نمیرسد |
| عوامل محدودکننده اصلی | ساخت نوار کاسپاری، پوسیدگی نوک ریشه، رقابت K+ و NH4+ | لایه مومی کوتیکول، خشک شدن سریع قطره، رطوبت نسبی پایین |
| پایداری تأمین عنصر | پیوسته در صورت وجود رطوبت خاک و تعرق فعال در روز | مقطعی، شوکمانند و بسیار وابسته به تکنیک کالیبراسیون سمپاش |
| سرنوشت نهایی یون | انتقال به اندام با بالاترین نرخ تعرق (عمدتاً برگهای سایهانداز) | تشکیل پکتات کلسیم در دیواره و رسوب اگزالات کلسیم در واکوئل برگ |
پروتکلهای عملیاتی برای تضمین ورود کلسیم به درون بافت میوه
حال که مشخص شد کلسیم از برگ به میوه نمیرود و از ریشه هم در فاز پایانی به دلیل مهار تعرق میوه مسیر بسته است، راهکار بیوفیزیکی نجات محصول چیست؟ رویکرد مهندسی باغات بر سه تاکتیک پایهای استوار است: تزریق مستقیم به سطح خود میوه، بهرهبرداری از فشار ریشهای شبانه و تنظیم تعرق رقابتی میان برگ و میوه.
├─► ۱. زمانبندی: محلولپاشی مستقیم روی گلچه و میوه جوان (فاز تقسیم سلولی)
├─► ۲. هدفگیری فیزیکی: تنظیم نازلها مستقیماً به سمت میوه (نه سطح برگ)
├─► ۳. مهار رقیب: هرس تابستانه شاخههای رویشی (حذف جاروبرقیهای کلسیم)
└─► ۴. پمپاژ شبانه: آبیاری ملایم شبانه برای ایجاد فشار ریشهای بدون تعرق
زمانبندی طلایی؛ مداخله در پنجره تقسیم سلولی اولیه
میوه در طول عمر خود دو فاز رشدی را سپری میکند: فاز اول «تقسیم سلولی» (Cell Division) و فاز دوم «طویلشدن سلولها» (Cell Enlargement). تمام سلولهایی که در آینده قرار است میوه را بسازند، در فاز اول (معمولاً ۲ تا ۶ هفته پس از لقاح بسته به گونه گیاهی) تولید میشوند. در این بازه:
- تعداد سلولها به طور تصاعدی افزایش مییابد و هر سلول جدید نیازمند تیغه میانی و پکتات کلسیم است.
- روزنههای میوه هنوز فعال و بدون پوشش واکسی غیرقابل نفوذ هستند.
- آوندهای چوبی متصل به دمگل هنوز دچار گسستگی مکانیکی نشدهاند.
پنجره طلایی اثرگذاری بر غلظت نهایی کلسیم میوه، دقیقاً همین بازه است. هرگونه محلولپاشی برگی باید با کالیبراسیون نازلها مستقیماً بر روی خوشهها و میوههای جوان متمرکز شود تا یون کلسیم از طریق روزنههای باز میوه و منافذ کوتیکول نازک اولیه به درون بافت آن رسوخ کند. پس از این پنجره، هرچه بر روی درخت کلسیم بپاشید، صرفاً روی لایه مومی ضخیم سر میخورد یا به برگها چسبیده و حبس میشود.
مدیریت تعرق شبانه و پدیده تعریق (Guttation) از طریق فشار ریشهای
در طول روز، برگها برنده قطعی مکش آب هستند و اجازه ورود کلسیم به میوه را نمیدهند. اما شبهنگام ورق برمیگردد! در تاریکی شب، روزنههای برگ بسته میشوند و تعرق برگها به نزدیک صفر میرسد. در این زمان، اگر خاک رطوبت کافی و دمای مطلوب داشته باشد، ریشهها به پمپاژ فعال یونها به درون استوانه چوبی ادامه میدهند. تجمع یونها در آوند، پتانسیل اسمزی را کاهش داده و آب را به درون آوند میکشد که این رویداد موجب تولید «فشار مثبت ریشهای» (Root Pressure) میشود.
این فشار هیدرولیکی بر خلاف کشش تعرقی، کور است و آب را بدون توجه به باز یا بسته بودن روزنه، به تمام بافتها از جمله میوهها میراند. پدیده شبنم لبه برگها یا تعریق (Guttation) نشانه بیرونی این رویکرد است. در باغات و گلخانهها، با اجتناب از تنش خشکی شبانه و کنترل تهویه گلخانه برای بالا بردن رطوبت نسبی در اواخر شب، جریان هیدرولیکی روزنهای برگ مهار شده و کلسیم با استفاده از فشار ریشهای به درون میوهها و بافتهای مریستمی دارای تعرق ضعیف تزریق میشود.
مدیریت سایهانداز و کنترل تعرق رقابتی برگها (هرس تابستانه)
رشد بیش از حد شاخههای رویشی، پاشنه آشیل انتقال کلسیم به میوه است. نرکها و شاخههای سرکش تابستانه، سطح برگ زیادی با روزنههای کارآمد دارند و مانند تلمبههای مکنده، اجازه رسیدن شیره خام حامل کلسیم را به میوههای مستقر در عمق تاج درخت نمیدهند.
انجام هرس تابستانه اصولی و حذف شاخههای سایهانداز نرک نه تنها نفوذ نور را بهبود میبخشد، بلکه سطح تعرق رویشی را کاهش میدهد. با حذف این جاذبهای هیدرولیکی رقابتکننده، سهم خوشهها و میوهها از شیره خام حاوی کلسیم بالا میرود.
مقایسه فرمولاسیونهای کلسیم: انتخاب منبع صحیح شیمیایی
برای محلولپاشی کلسیم، گزینش مولکول شیمیایی متناسب با ریسک گیاهسوزی و جذب پسیو بسیار مهم است:
کلرید کلسیم (CaCl2):
بالاترین درصد کلسیم عنصری و قدرت نمگیری (Deliquescence) فوقالعاده بالایی دارد. این ترکیب رطوبت هوا را جذب کرده و مدت طولانیتری روی بافت مرطوب میماند که اجازه نفوذ کلسیم را میدهد. بزرگترین عیب آن، خطر مسمومیت و گیاهسوزی برگ و میوه در دمای بالای ۲۸ درجه سانتیگراد است.
نیترات کلسیم (Ca(NO3)2):
کلسیم سریعالجذب برای مصارف خاکی و برگی است. با این وجود، مصرف برگی آن در مراحل پایانی رشد میوه به دلیل ورود نیتروژن نیتراتی، نسبت N/Ca را به زیان کلسیم برهم میزند و منجر به کاهش سفتی بافت و افت کیفیت انبارداری میشود.
کلاتهای آلی کلسیم (پپتیدها، قندالکلها و لیگنوسولفونات):
این فرمولاسیونها یون کلسیم را در یک قفس مولکولی خنثی نگه میدارند. این ویژگی برهمکنش الکترواستاتیکی با بار منفی کوتیکول را کاهش داده و نفوذ پوستی را تا حدی ارتقا میدهد، اما به یاد داشته باشید که کلات هم نمیتواند کلسیم را در آوند آبکش به حرکت درآورد؛ کلات فقط نفوذ موضعی از پوست میوه را آسانتر میسازد.
سیگنالهای اعتماد و عارضهیابی بافت میوه
یک کارشناس ارشد برای اطمینان از سلامت بافت میوه، متکی به نشانههای ظاهری نمیماند. علائم معمولاً زمانی پدیدار میشوند که تخریب غشای سلولی غیرقابل جبران شده است:
├── نسبت K/Ca > 30 ──► ریسک حتمی فروپاشی غشا و لکه تلخی
├── نسبت (K+Mg)/Ca > 35 ──► اختلال شدید نفوذپذیری سلولی
└── نسبت N/Ca > 10 ──► تاخیر در سنتز کوتیکول و پوسیدگی گلگاه
برای پیشبینی رفتار بافت در انبارداری، آنالیز مستقیم گوشت میوه (بدون پوست و بذر) در مرحله پیش از برداشت ضروری است. اگر غلظت کلسیم خالص در میوه تازه کمتر از ۴.۵ تا ۵ میلیگرم در ۱۰۰ گرم وزن تر باشد، نگهداری طولانیمدت در سردخانه به فاجعه فروپاشی پکتین و لکه تلخی خواهد انجامید.
- جذب کلسیم از ریشه: آپوپلاستی، غیرفعال، وابسته به جریان تودهای تعرق در آوند چوبی و محدود به نوک ریشههای بدون نوار کاسپاری است.
- جذب کلسیم از برگ: جذب از منافذ قطبی کوتیکول با راندمان متغیر، بدون هیچگونه خروج یا ترانزیت به سایر اندامها به دلیل پیوند فوری با پکتین و خطرات فیزیولوژیک افزایش کلسیم سیتوزولی.
- عدم انتقال کلسیم به میوه: ناشی از ناممکن بودن حرکت کلسیم در آوند آبکش، تبدیل روزنههای میوه به عدسک و کاهش تعرق، و انتقال ترجیحی جریان چوبی به سمت برگهاست.
- تنها راه تأمین کلسیم در میوه: برخورد فیزیکی مستقیم قطرات کود با پوست میوه جوان در فاز تقسیم سلولی اولیه، در کنار مهار رشد رویشی شاخهها و تقویت فشار ریشهای شبانه.
بخش سوالات متداول (FAQ)
چرا محلولپاشی کلسیم روی برگها تأثیری در تغذیه میوه ندارد؟
+
چون کلسیم در آوند آبکش (Phloem) حرکت نمیکند و پس از جذب توسط برگ، در دیواره سلولزی به شکل پکتات کلسیم تثبیت میشود. یون کلسیم نمیتواند از برگ مسن به سمت میوه مهاجرت کند؛ بنابراین محلولپاشی برگی تنها در صورتی برای میوه سودمند است که قطرات مستقیماً روی پوست خود میوه بنشینند و جذب شوند.
چرا کلسیم نمیتواند از طریق آوند آبکش جابهجا شود؟
+
کلسیم یک پیامرسان ثانویه حیاتی در سلول است و غلظت آزاد آن در سیتوپلاسم باید در حد نانومولار بماند تا سمیت سلولی رخ ندهد. علاوه بر این، در pH بازی آوند آبکش، کلسیم بلافاصله با فسفاتهای حیاتی و ATP رسوب فسفات کلسیم نامحلول داده و لولههای غربالی را مسدود میسازد.
چرا با رشد و بلوغ میوه، انتقال کلسیم از ریشه به آن متوقف میشود؟
+
با افزایش سن میوه، لایه مومی کوتیکول ضخیم شده و روزنهها به عدسکهای غیرفعال تبدیل میشوند. این فرآیند تعرق میوه را به شدت کاهش میدهد؛ از آنجا که ورود کلسیم ریشهای منحصراً توسط کشش تعرقی آوند چوبی صورت میگیرد، شیره خام ترجیحاً به سوی برگهای پرتعرق حرکت کرده و ترانزیت کلسیم به میوه قطع میگردد.
چرا کلسیم فقط از نوک ریشههای جوان جذب میشود؟
+
نوار کاسپاری در لایه آندودرم ریشه از جنس سوبرین آبگریز است و سدی غیرقابل عبور برای انتقال آپوپلاستی یونهای دوظرفیتی مانند کلسیم ایجاد میکند. کلسیم فقط میتواند از نوک ریشههای تمایزنیافته و شکاف ریشههای جانبی که فاقد این نوار هستند وارد آوند چوبی شود.
پنجره طلایی برای جذب مستقیم کلسیم به میوه چه زمانی است؟
+
پنجره طلایی، مرحله تقسیم سلولی اولیه (۲ تا ۶ هفته اول پس از باز شدن گلها) است؛ چراکه در این دوره روزنههای میوه هنوز باز و بدون واکس متراکم هستند و دیواره سلولهای نوبنیاد بالاترین پذیرش را برای تثبیت پکتات کلسیم دارند.
Featured Snippet Ready
سوالات متداول (پاسخهای سریع و شفاف)
چرا محلولپاشی کلسیم روی برگ میوه را تغذیه نمیکند؟
کلسیم عنصری بیتحرک است و منحصراً در آوند چوبی حرکت میکند. به دلیل غلظت فوقالعاده ناچیز کلسیم در آوند آبکش، انتقال آن از برگ به سایر اندامها محال است. یون کلسیم جذبشده توسط برگ بلافاصله به شکل پکتات کلسیم در دیواره سلول تثبیت شده و هرگز به میوه مهاجرت نمیکند.
علت شکست انتقال ریشهای کلسیم به میوههای رسیده چیست؟
جذب ریشهای متکی به پتانسیل مکش تعرق است. با بزرگ شدن میوه، روزنهها به عدسکهای غیرفعال تبدیل شده و موم کوتیکول ضخیم میگردد؛ در نتیجه تعرق میوه ۵۰ برابر کمتر از برگها میشود. این امر جریان شیره خام حامل کلسیم را ترجیحاً به سوی سایهانداز برگها منحرف میسازد.
بهترین زمان و شیوه افزایش کلسیم گوشت میوه چیست؟
تنها راهکار مؤثر، سمپاشی مستقیم قطرات کلسیم روی پوست میوه طی ۲ تا ۶ هفته پس از لقاح (فاز تقسیم سلولی) است؛ زیرا روزنههای میوه هنوز فعال بوده و کوتیکول نازک است. همچنین هرس تابستانه شاخههای رویشی و آبیاری شبانه برای القای فشار ریشهای توصیه میشود.